从器官结构理解一株甘蔗
从一株甘蔗的根、茎、叶、芽出发,本篇把可见形态连接到内部组织、碳与水的流动、开花结实和宿根更新。前12个单元建立器官与生活史基础,后10个单元深入通气组织、木质化、叶片发育、C4机制、蔗糖周转、芽与分蘖调控,以及从植物学描述走向可比较的测量。实物照片、研究图版、原创示意与逐项来源相互配合,使观察对象、研究结论和适用条件能够被重新核查。
An illustrated manuscript in 22 units. Twelve foundation units establish organ identity and the life cycle; ten advanced units connect anatomy, carbon and water relations, sucrose turnover, bud regulation, reproduction and ratoon renewal to research methods. Authentic source images and original explanatory diagrams are distinguished throughout, with references and conditions attached to the claims.
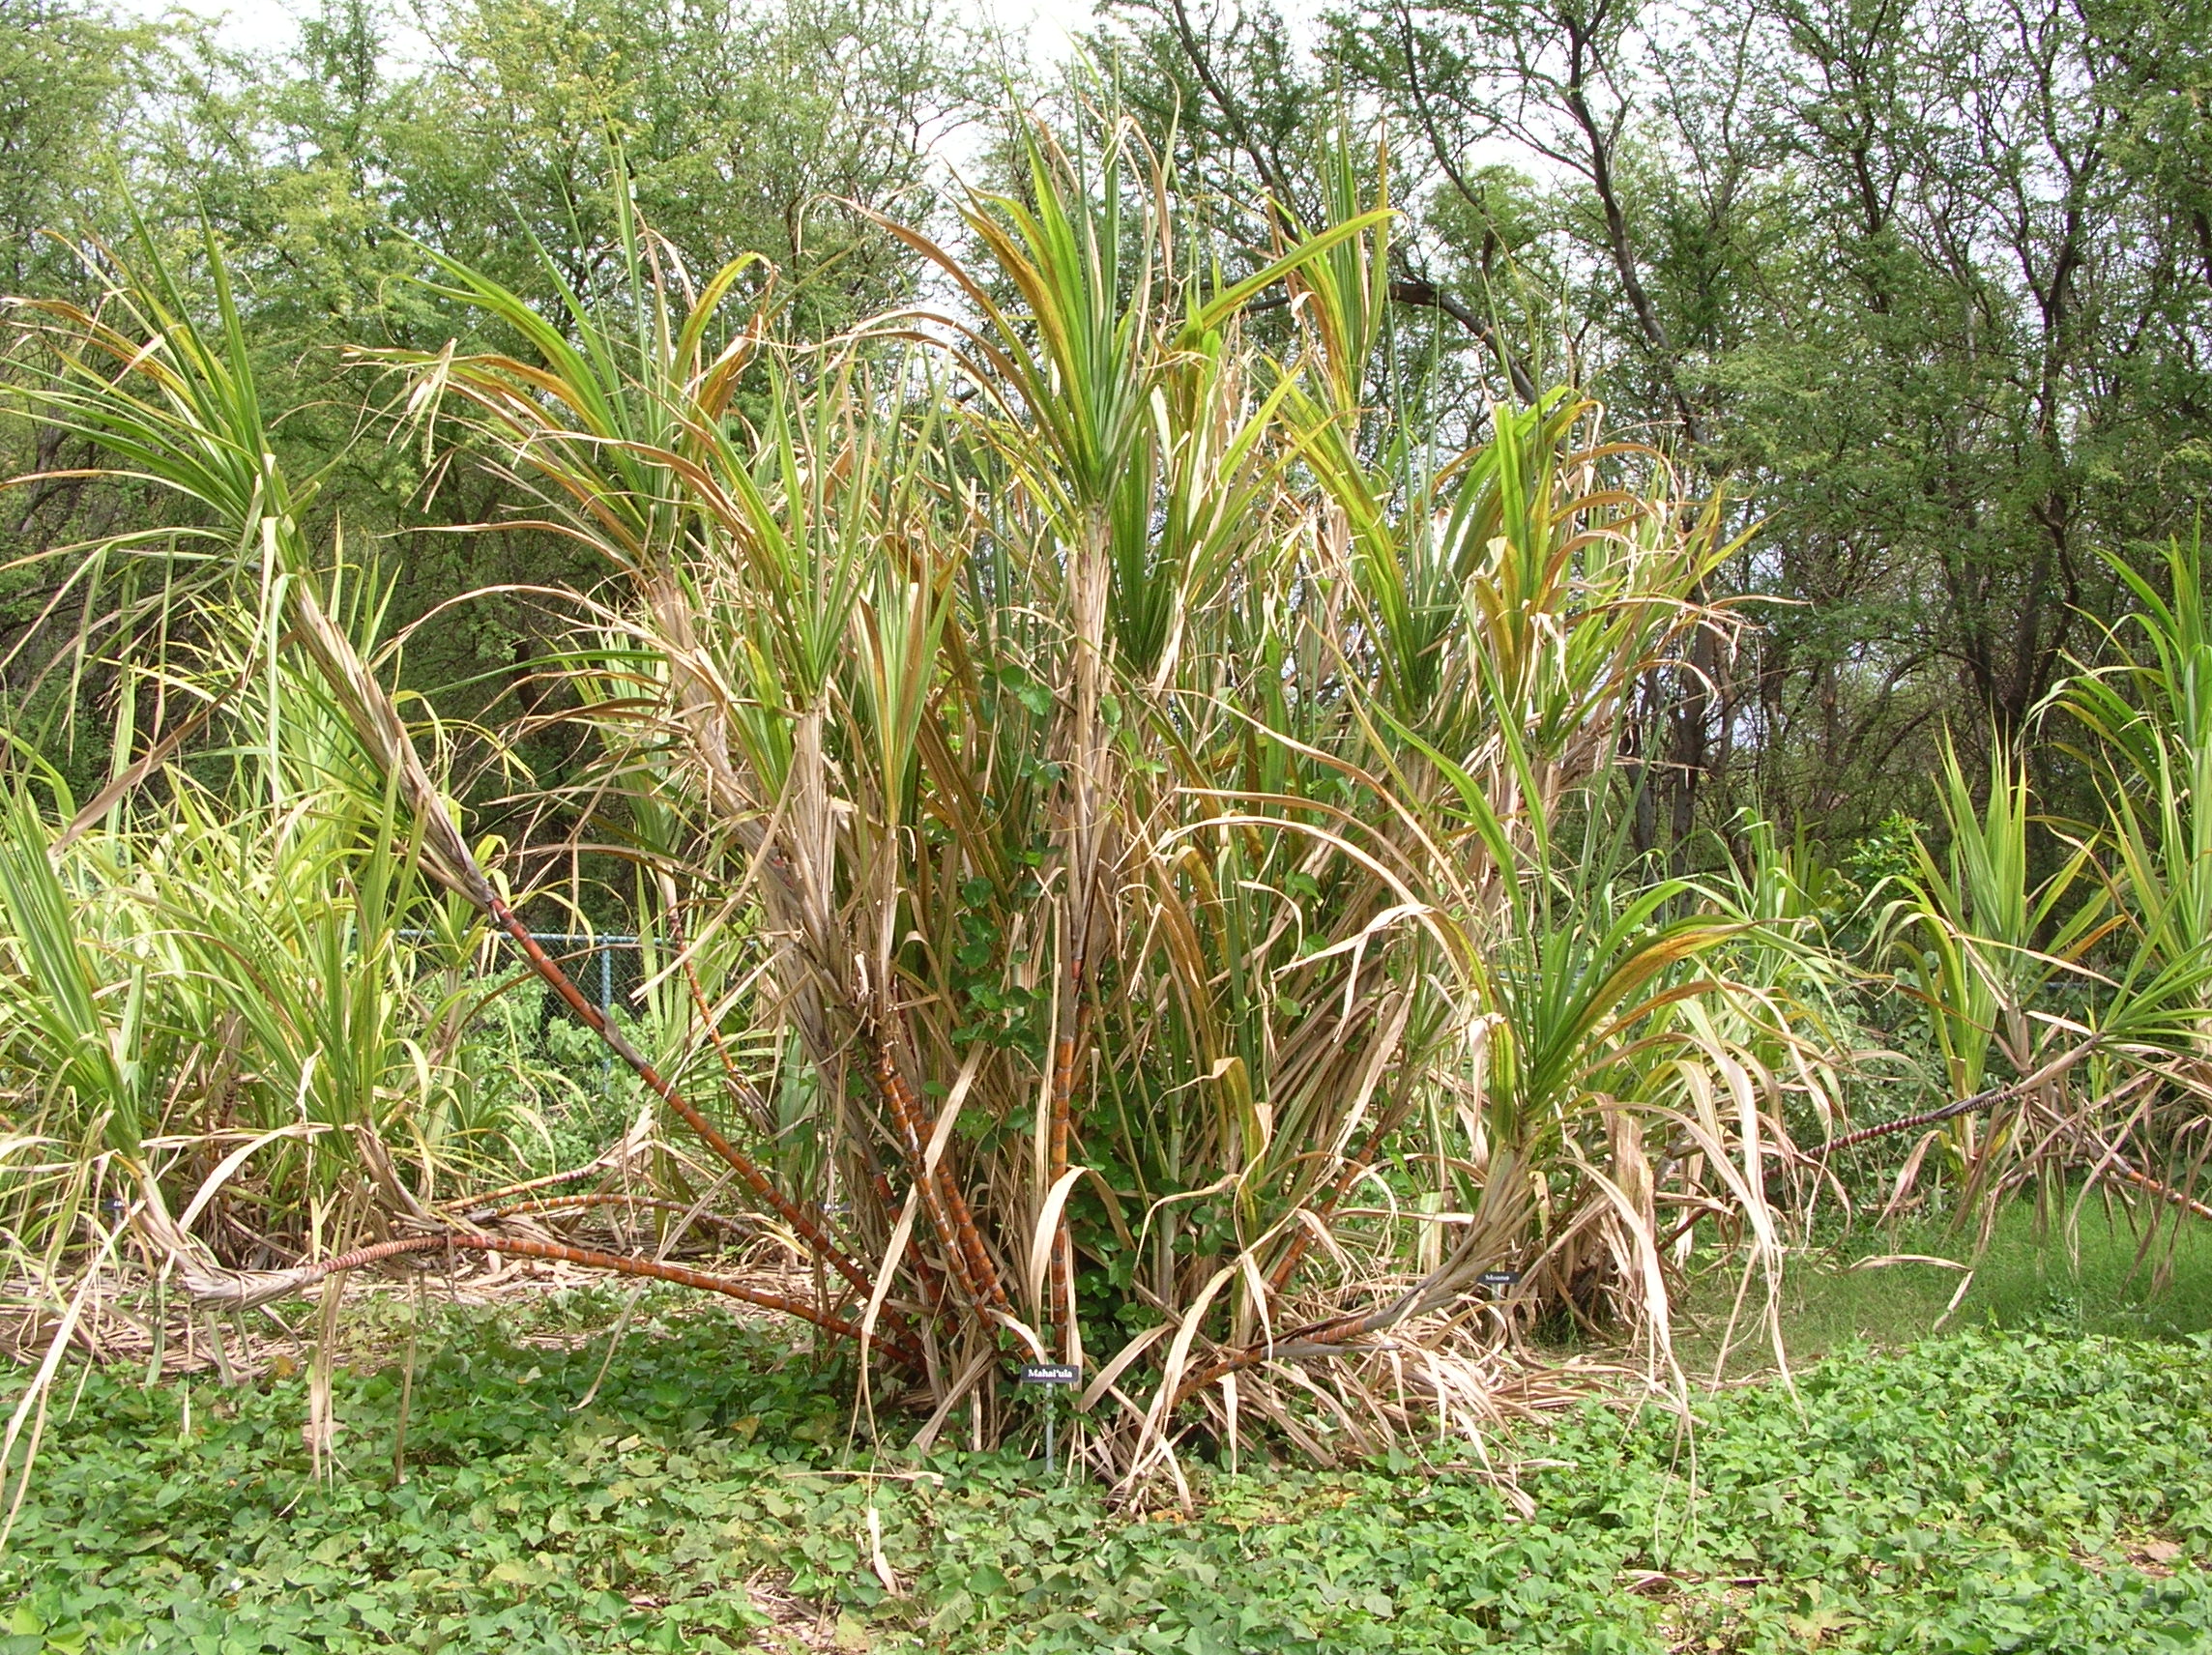
认识甘蔗:植物学名称与栽培品种
What is sugarcane? Names and cultivated varieties
先明确研究对象,再讨论它的结构和功能。
甘蔗是高大、多年生的禾本科植物。植物学的观察对象包括根、茎、叶、芽及适宜条件下形成的花序和种子;送进糖厂的蔗茎只是其中的经济器官。Kew的植物名录将Saccharum officinarum L.列为禾本目、禾本科、甘蔗属的接受种。[1]
现代商业甘蔗不能全部简单写成纯种S. officinarum。许多品种由甘蔗属不同祖先参与杂交和回交形成,具有复杂的多倍体、非整倍体背景;“Saccharum spp. hybrids”是常用的群体性表述。2024年的R570基因组研究说明了这种复杂性,但一个品种的染色体数或祖源比例不能代表所有甘蔗。[2]
物种名、品种名和田间俗称承担不同任务。物种名描述分类归属;品种名指特定选育材料;“红皮蔗”“青皮蔗”等称呼可能只反映某地的外观习惯。本章图片的具体品种未经核实处,均保持未知,不根据茎色补填身份。起源、驯化与传播的详细讨论,可接着阅读GAKI既有的《第二节 甘蔗起源于哪里?》。
表01 三种名称的使用
| 名称 | 含义 | 记录方式 |
|---|---|---|
| 甘蔗 / sugarcane | 农业与日常用语中的统称 | 另记具体材料 |
| S. officinarum | 一个接受的植物学物种 [1] | 保留学名及鉴定依据 |
| 现代杂交品种 | 选育出的特定无性系 [2] | 保留品种代号与种源 |
Sugarcane is a perennial grass, but commercial sugarcane is not one uniform botanical entity. Distinguish the accepted species Saccharum officinarum from named commercial cultivars and from the broader group of interspecific hybrids. Genome results for a named cultivar such as R570 are informative examples, not universal chromosome counts. A photograph can illustrate an organ while leaving cultivar identity unresolved.
返回本篇目录全株结构与生长点:甘蔗怎样长大
The whole plant and its growing regions
沿着根、茎、叶的连接位置,建立完整植株的认识。
从地面向下看,根系固定植株并从土壤获取水和矿质元素;向上看,蔗茎承托叶片,叶片参与光合作用。运输组织把这些器官连接起来,茎的部分组织又承担储藏。器官之间同时存在物质交换,不能把根、叶、茎理解为三个彼此独立的部件。[6, 22]
蔗茎顶端的生长点藏在幼叶包围的区域,营养生长时形成新的叶和茎的结构。幼嫩节间还存在活跃的伸长区域;因此,植株增高涉及新器官形成以及节间伸长,不是旧茎各处均匀拉长。顶端转入生殖发育后,可形成花序,详见单元09。[6, 13]
读图时也要区分尺度:整株照片可以显示叶姿和茎丛;剥去叶鞘的近照便于辨认茎节;横切或纵切提供内部位置;显微照片才可能显示细胞。用整株照片推算细胞结构,或用一小块切片代表田间群体,都会跨越证据本身的范围。
表02 从器官到功能
| 器官或组织 | 观察位置 | 主要作用 |
|---|---|---|
| 根系 | 土壤及茎基部周围 | 吸收与固定 |
| 蔗茎 | 节与节间连续排列 | 支撑、运输、储藏 |
| 叶 | 叶片连着叶鞘 | 同化与气体交换 |
| 芽和生长点 | 茎节、茎基部、梢端 | 新器官形成与新梢发生 |
| 花序与颖果 | 转入生殖发育后的茎顶 | 授粉、结实及有性后代 |
Roots, culms and leaves function as connected organs. New structures originate in growing regions, while young internodes extend. A whole-plant photograph, a dissected node and a microscopic section answer questions at different scales. Record which organ and developmental position each observation represents.
返回本篇目录根系:种茎根与茎生根的接替
Roots: establishment, renewal and anchorage
根的名称应说明发生位置,根深则需要实际观测。
甘蔗的根系整体呈须根系。种茎栽植后,原有茎节的根原基可形成种茎根;新芽长成幼茎后,幼茎下部节位又形成茎生根,也称植株根。前者支持建株早期,后者逐渐承担新芽茎的主要吸收和固定功能。后续分蘖还会建立自己的根系。[3, 4]
种茎根和茎生根不是按“短根、长根”划分的两个永久类别。识别时应先找到根与哪一段茎相连,再看其年龄、分枝和状态。把种茎刚发出的几条根标成“成熟甘蔗根系”,或者把一条粗根认作永久主根,都不符合这个发生过程。
根系分布会随品种和作物周期改变。Zhao等在云南开远对四个基因型连续观察新植及两季宿根,记录到明显的材料与周期差异。Ohashi等在巴西地下滴灌施肥条件下比较三个品种,也发现根生长随品种及观察时期变化。[7, 8]
根量集中分布层、有效根区和最深一条根的位置,是不同指标。挖出的根部照片往往丢失了部分细根,也不保留原来的土层关系。本章根系示意只说明根从哪里发生;后续土壤研究应另记采样深度、方法、含水条件与土壤阻力。
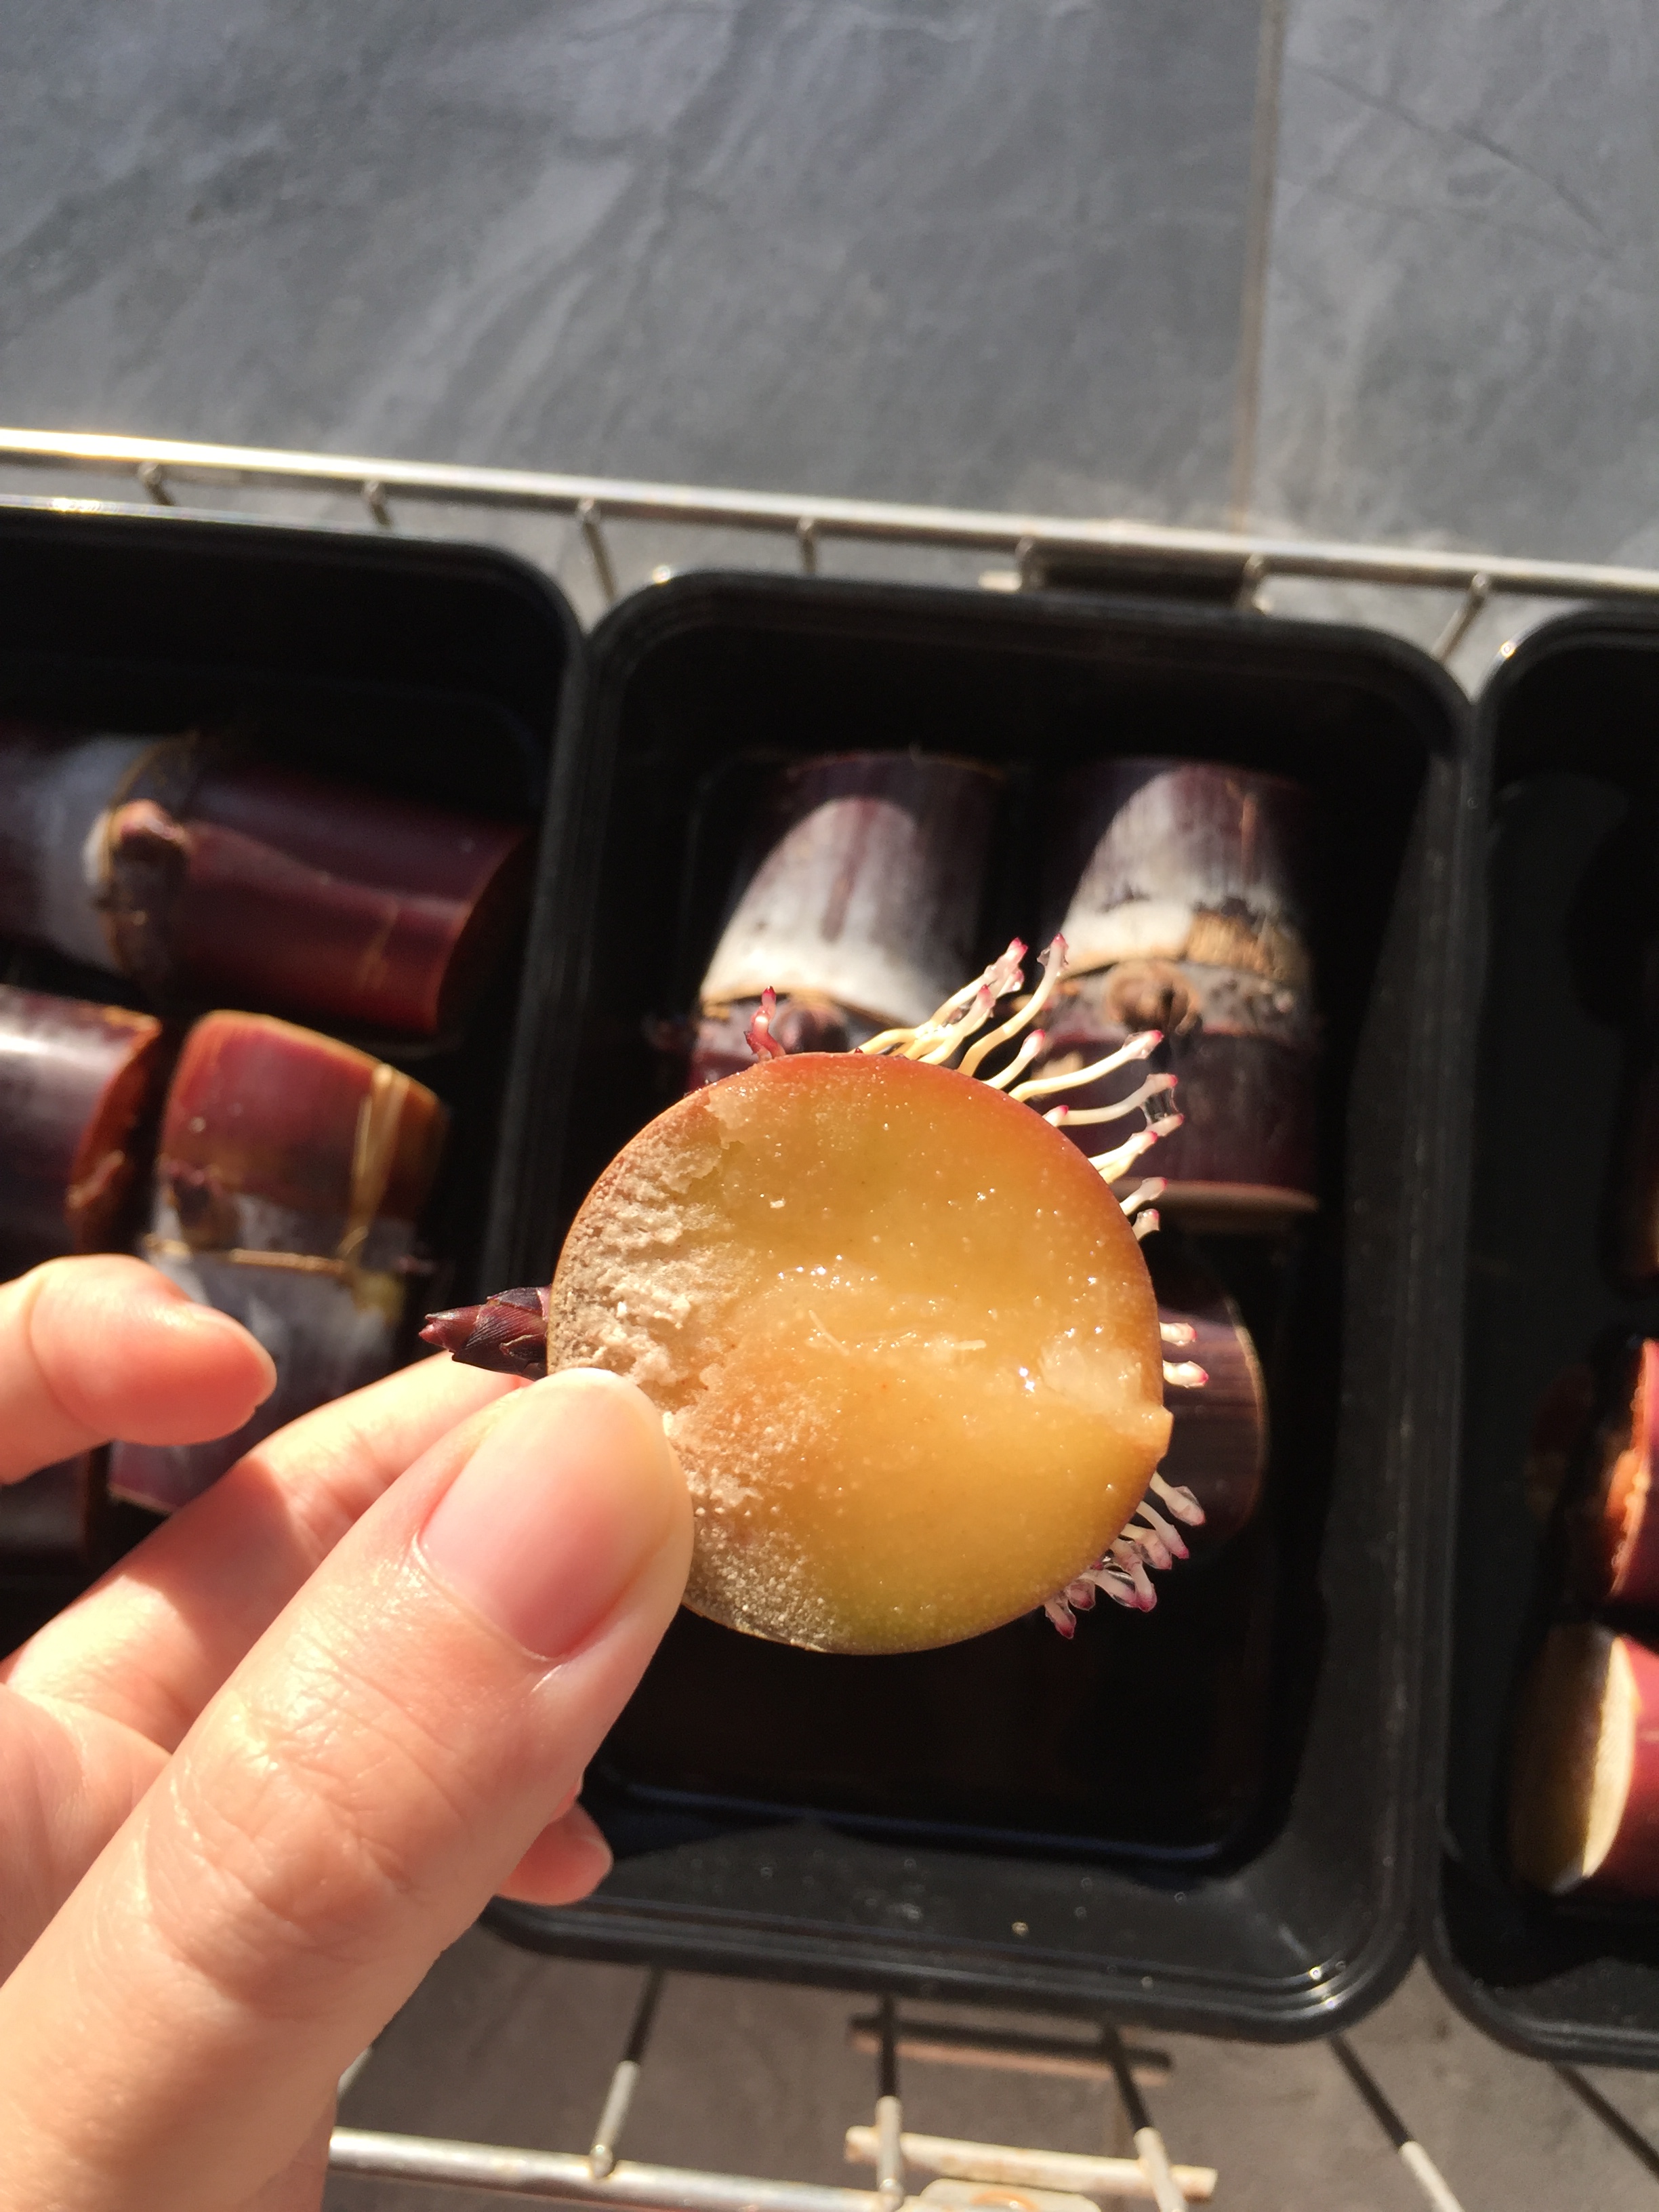

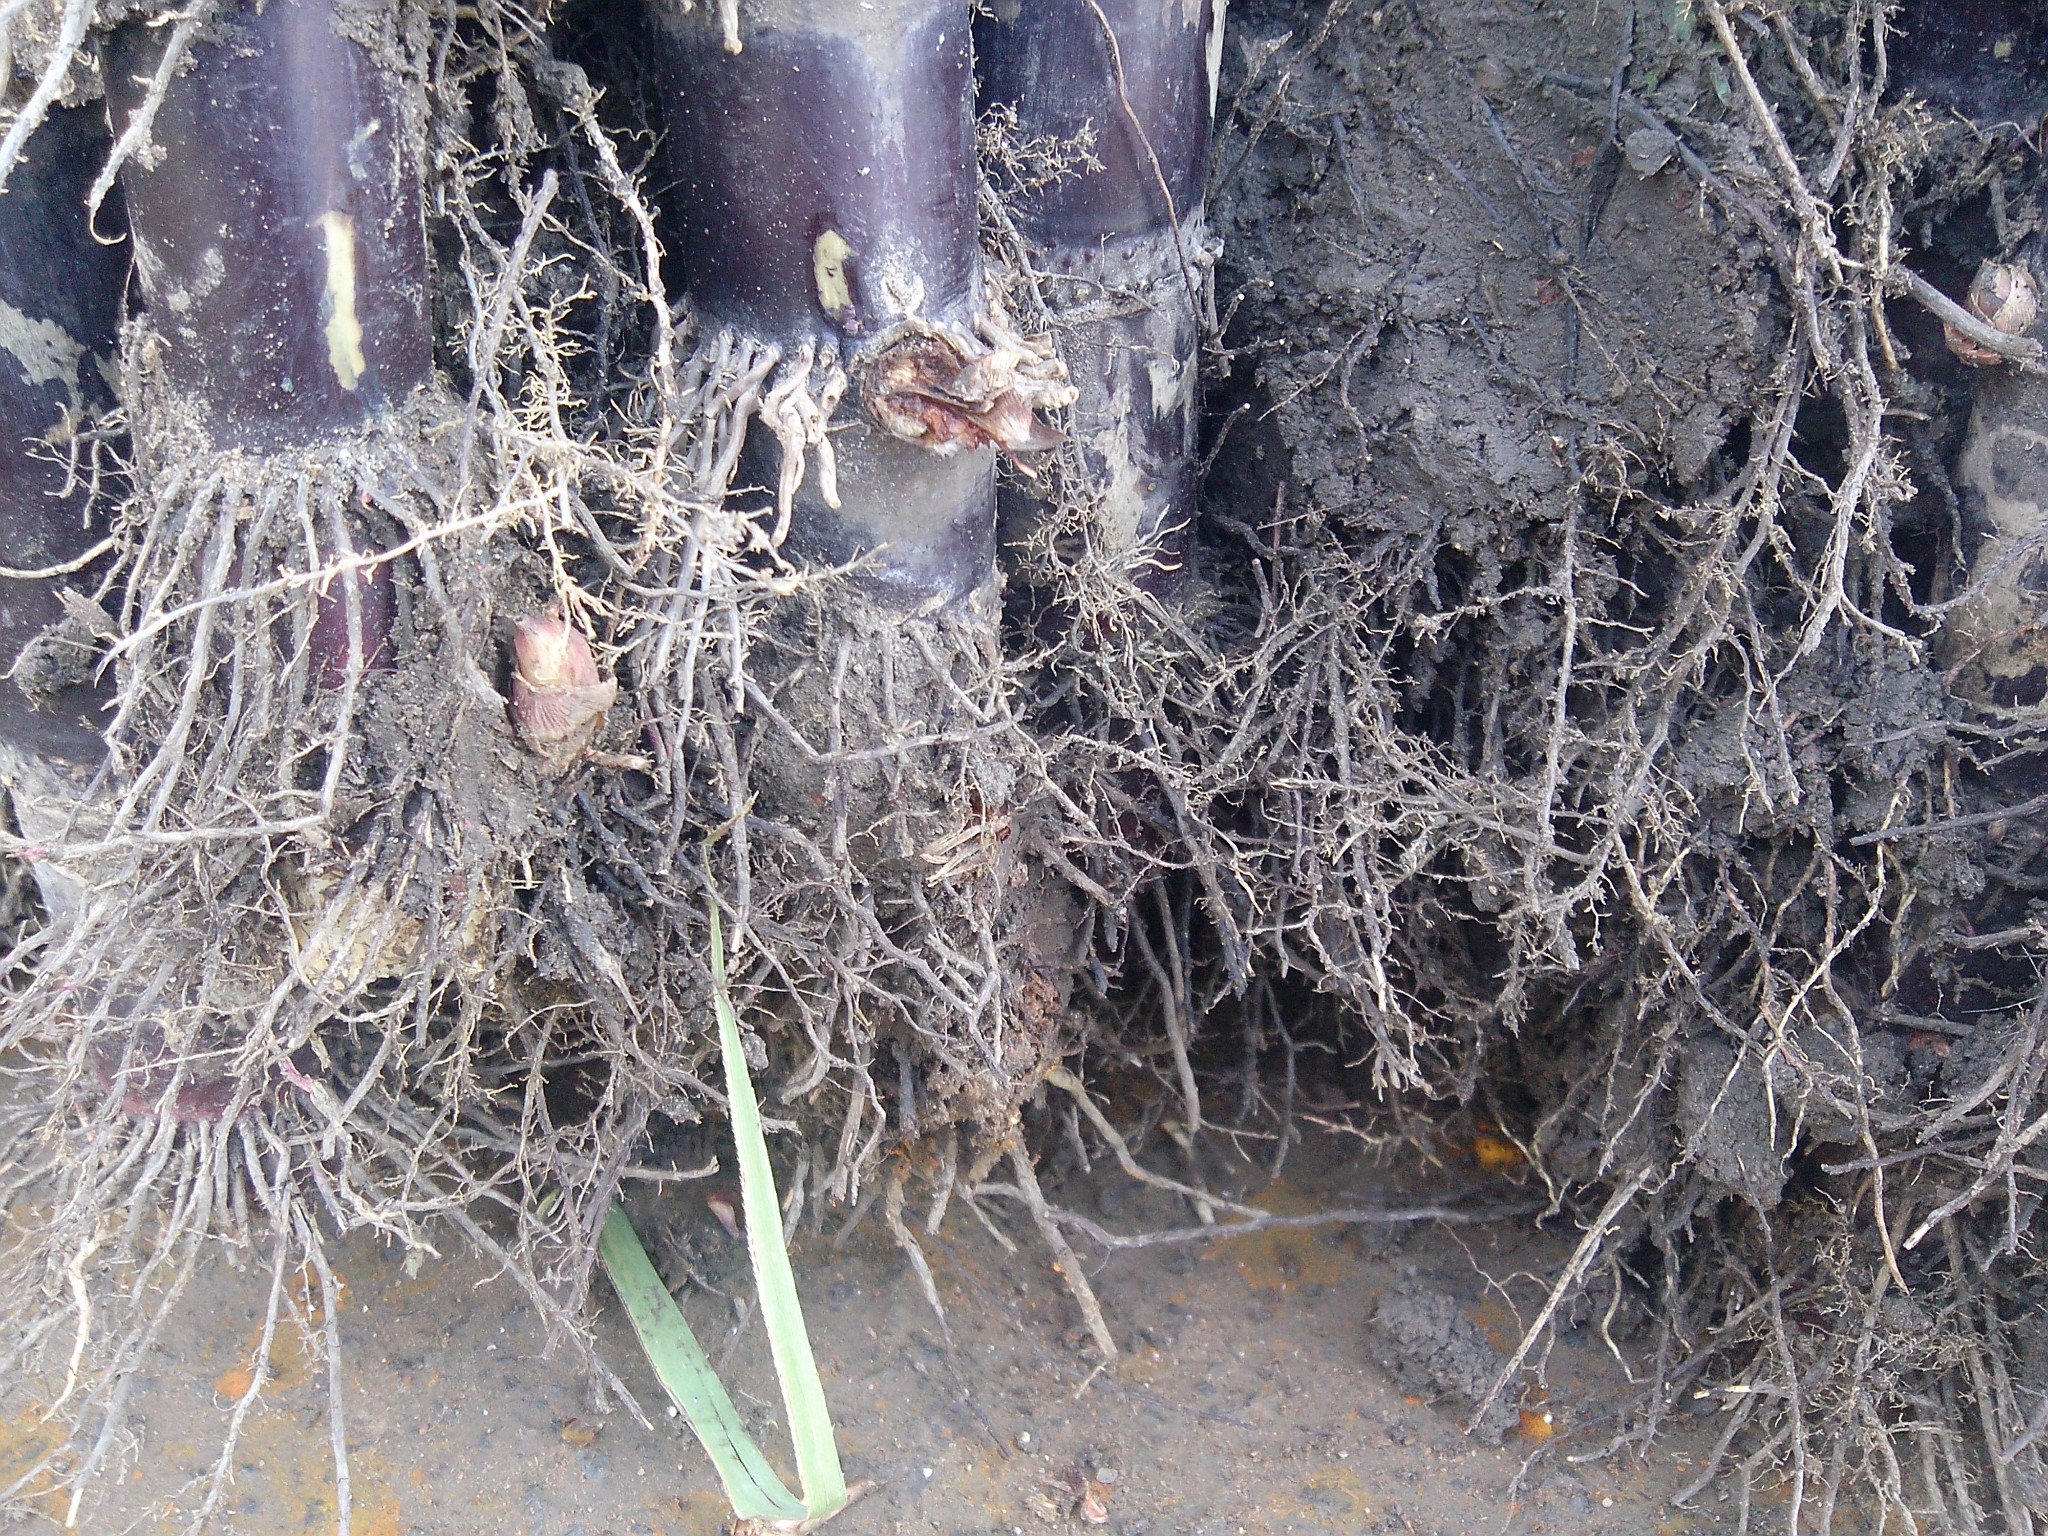

Sett roots originate on the planted stem piece; shoot roots originate on the new shoots. The established system is continually renewed. Root distribution depends on genotype, crop cycle and environment. Maximum rooting depth cannot be read from an excavated fragment or inferred from the layer containing most observed roots.
返回本篇目录茎节、节间与芽:认清繁殖单元
Nodes, internodes and buds
先找到叶痕、芽与根带,再辨认它们各自的作用。
蔗茎由节和节间重复组成。节是叶着生的位置,也是芽和根原基集中出现的区域;相邻两节之间为节间。剥去叶鞘后,通常可以观察到叶痕、芽以及根带。表面可见的生长环、蜡环等纹带有不同来源,不能把每一道环纹都另算作一个节。[3, 5]
蔗芽内具有幼小的茎叶结构,它萌发后形成新芽茎。根原基则发育为根。两者在同一节附近出现,却具有不同的发育方向。这是理解种茎繁殖的关键:保留完整芽体,同时观察节部根原基和支持芽体的茎组织。
节间长度、形状、芽形和蜡粉等可用于描述材料,但应记录观察位置与条件。近梢部的幼节间、中部已伸长节间和基部节间,并不是同龄样品。UPOV的形态描述方法明确规定相应观察部位;本章采用其术语帮助识别,不把单一外观特征当作品种鉴定的充分证据。[5]
种植、取样和机械处理都可能使芽体与茎节受损。由结构可以推导出需要记录的损伤位置,但尚不能只凭一张茎节照片给出最佳切割位置、刀速或成苗率;这些属于另行试验的问题。
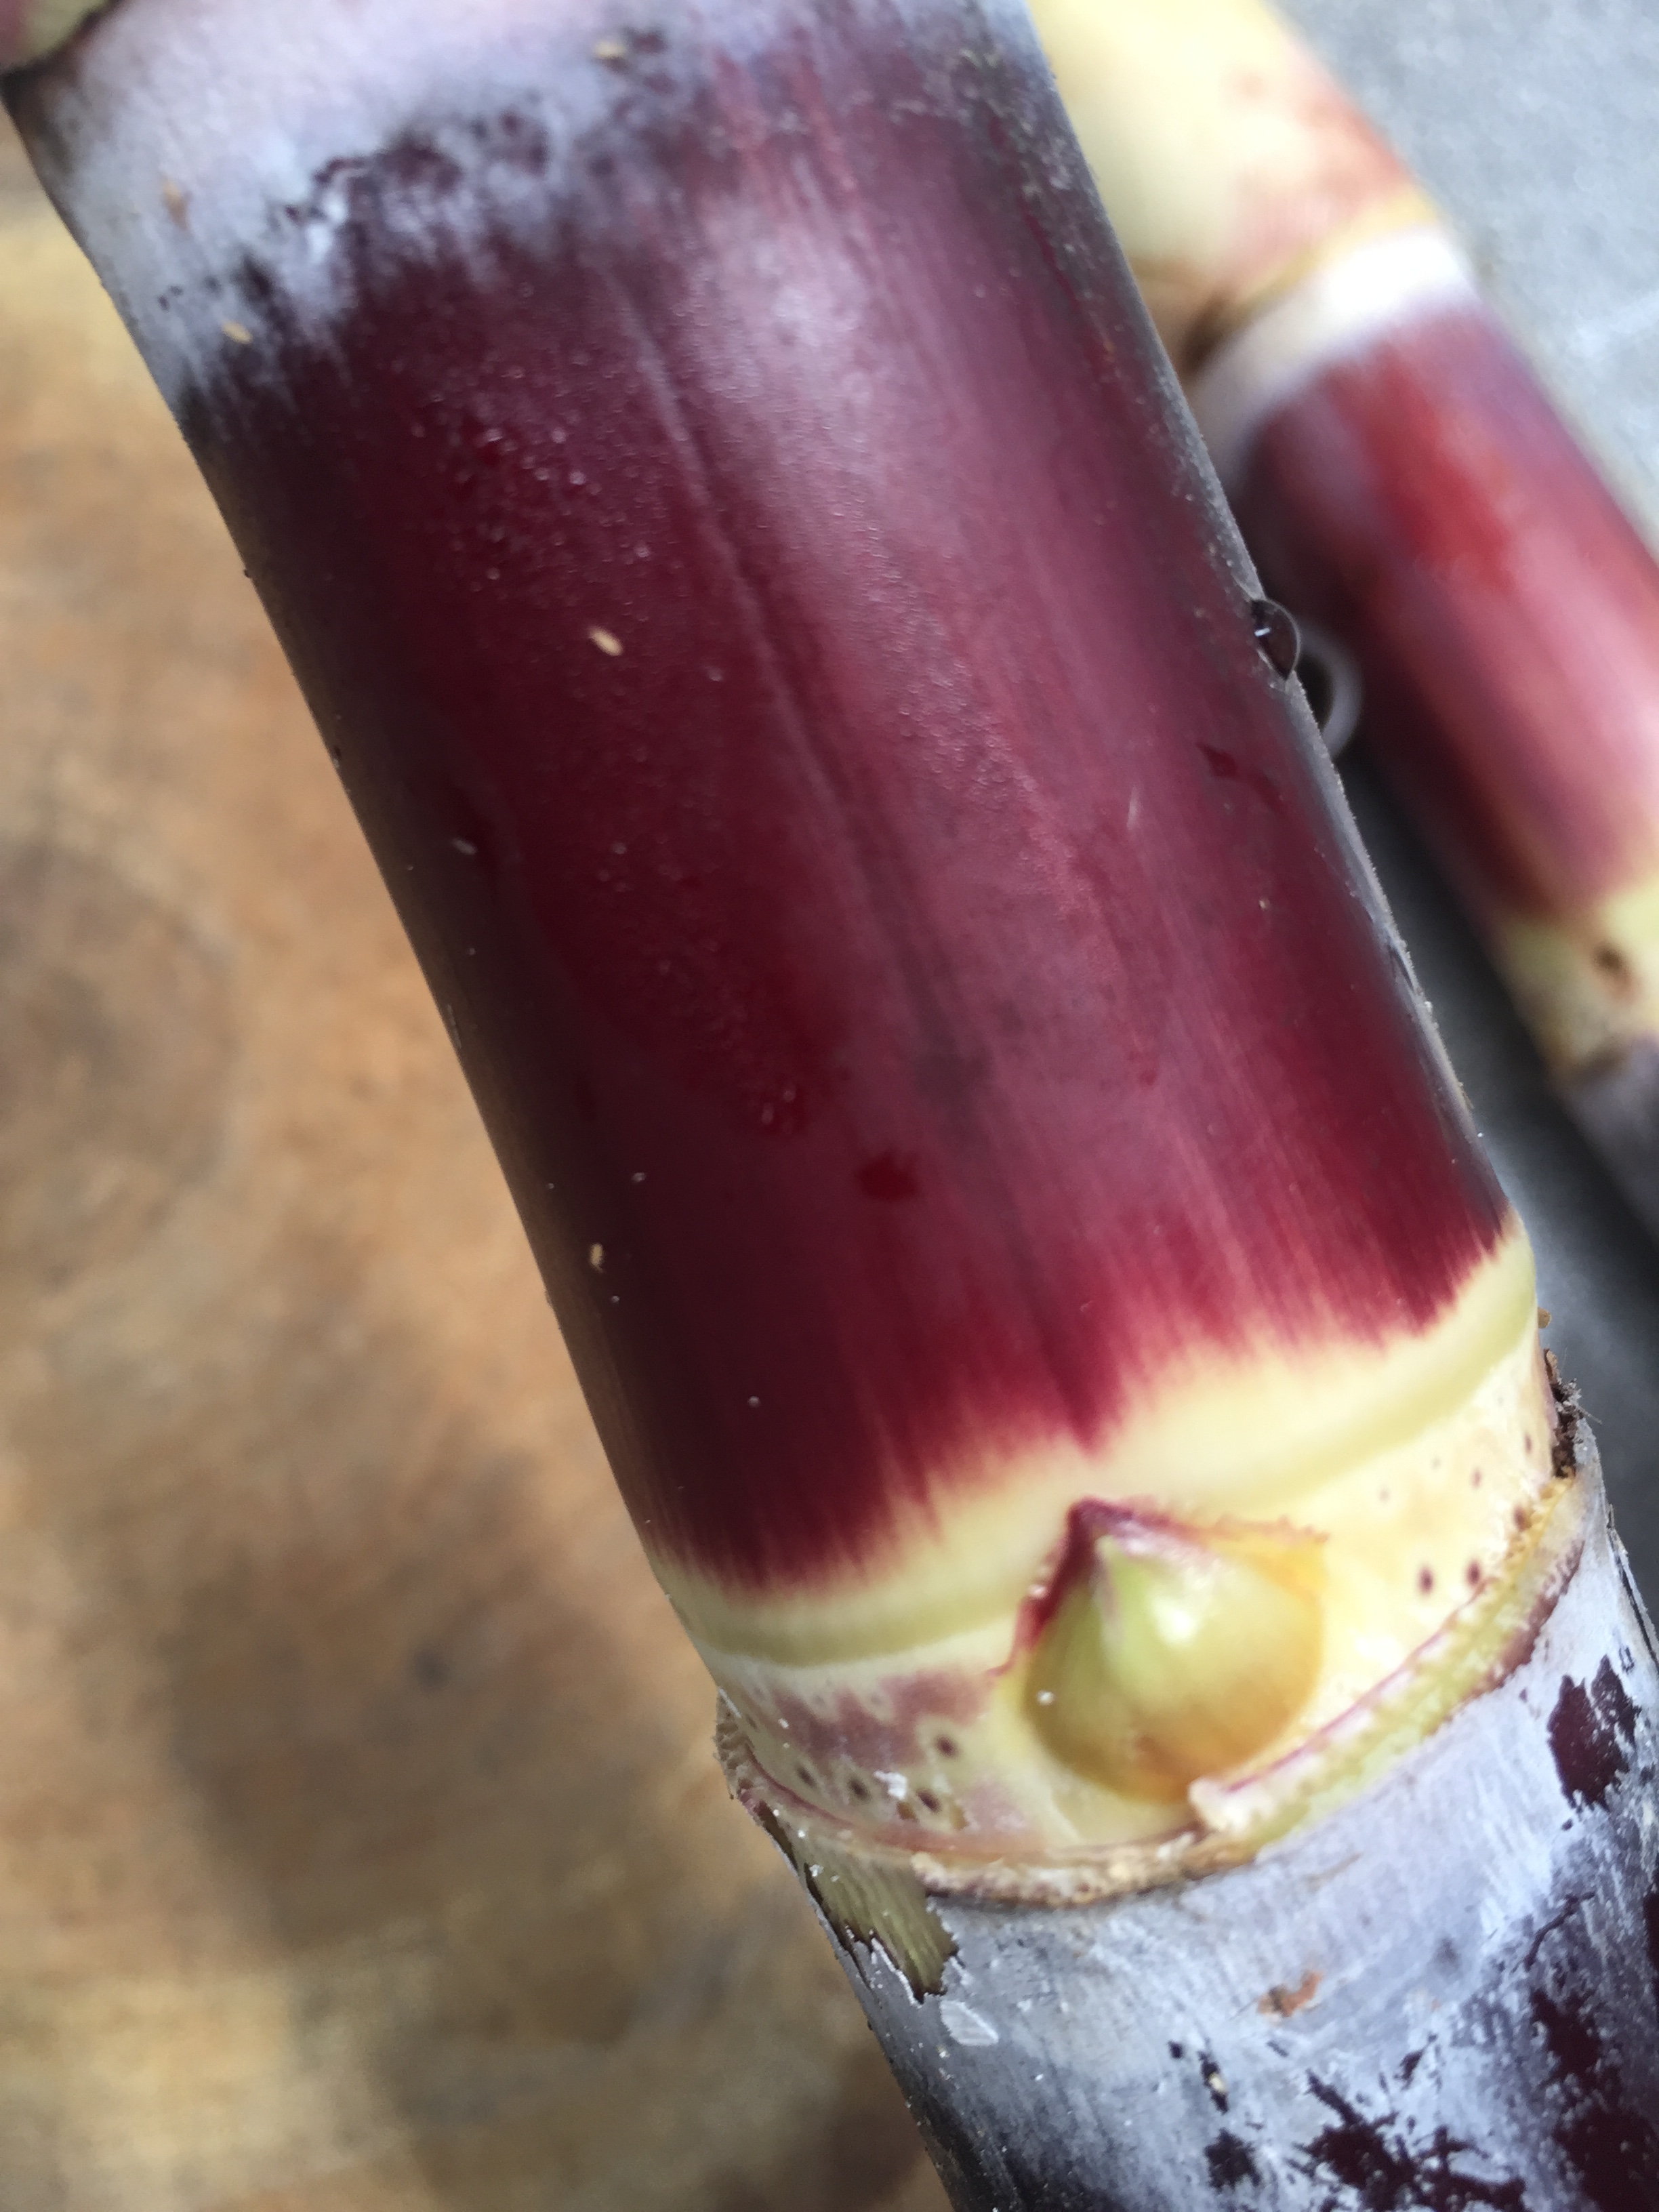
A node connects the leaf, bud and root primordia. A bud develops into a shoot; adjacent root primordia develop into roots. Internode and bud characters are useful descriptors only when observation position and material identity are documented. Anatomy identifies what can be damaged, but it does not by itself prescribe a machine setting.
返回本篇目录蔗茎内部:运输组织与储藏组织
Inside the culm: transport and storage tissues
维管束、纤维和薄壁组织共同构成蔗茎的内部。
正常蔗茎节间主要由实心组织构成。Siqueira等的显微研究可辨认导管、纤维和薄壁组织;在所研究材料中,外周区域维管束较密,中央区域薄壁组织占比较大。这里的“外周”和“中央”是取样部位,不能把外周局部照片标作整根茎的横切全景。[9]
木质部参与水及矿质元素的输导,韧皮部参与同化物运输,周围的纤维等组织提供机械支持。储藏薄壁组织与运输组织彼此相连,但不是同一种结构。Walsh等对蔗糖卸载路径的研究表明,组织边界和胞间连丝会影响同化物从运输部位进入储藏组织的途径。[6, 19]
节间随发育发生变化。Jacobsen等比较幼嫩和成熟节间,观察到木质化、栓质化及维管束周围组织性质的变化。因此,组织照片需要同时注明节位、年龄和制片方法;染色深浅并不能直接读作蔗糖含量。[10]
解剖知识也为工程观察提供依据:外周组织、内部薄壁组织和节点结构可能对切割、挤压有不同响应。这是选择试验部位的理由,而不是已经测得的力学参数。真实切割力、损伤率及取汁特性需要在明确含水率、品种和茎龄的试样上测定。
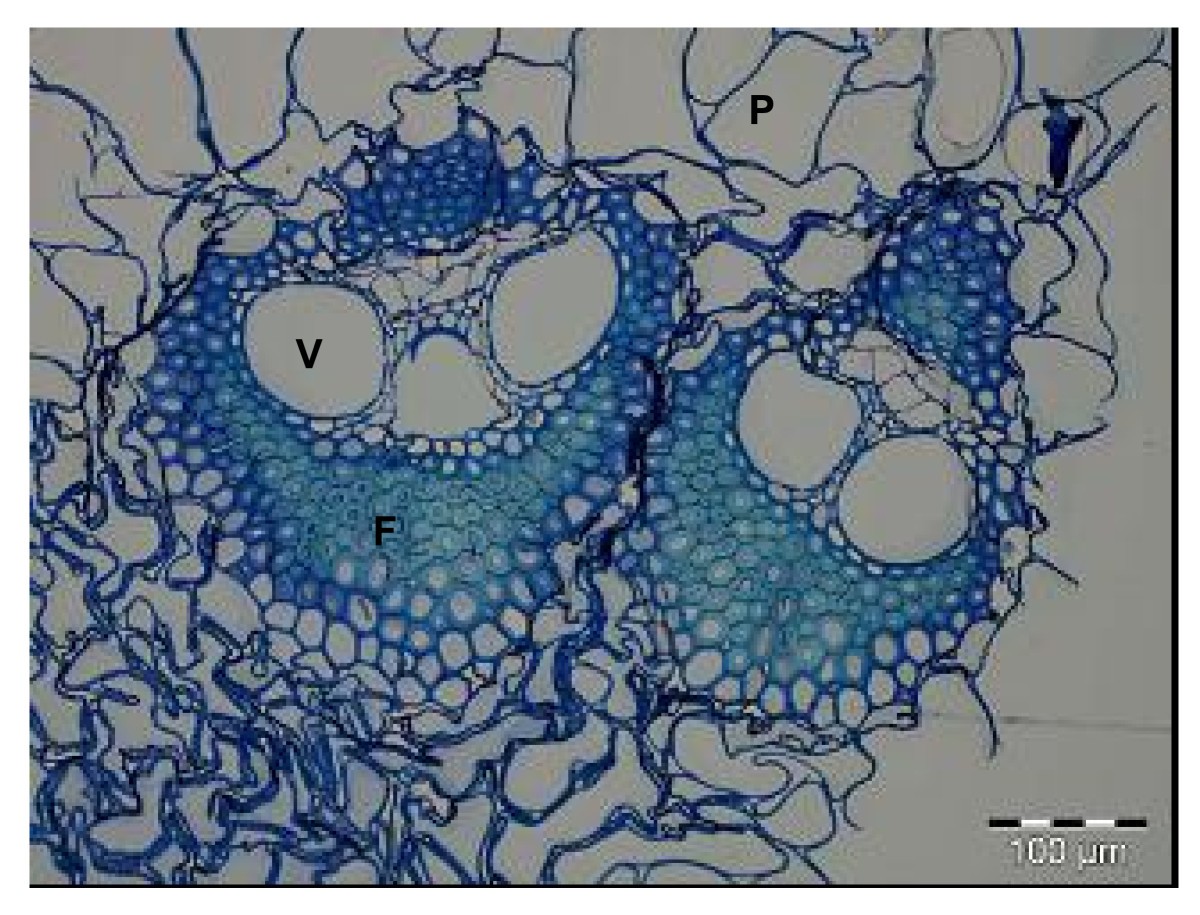
Vascular bundles, fibres and parenchyma are distinct tissues. Their distribution and properties vary across the stalk and with development. A stained micrograph reveals anatomy, not the amount of sucrose present. Mechanical interpretations should be treated as questions for measurement, not as performance data extracted from an image.
返回本篇目录叶:叶片、叶鞘、叶舌、叶耳与叶枕
Leaves: blade, sheath, ligule, auricle and dewlap
一片完整叶不仅是伸出的长叶片,还包括围抱茎秆的叶鞘。
甘蔗叶以叶片和叶鞘为主要部分:叶片向外伸展,叶鞘从茎节处发生并围抱茎秆。叶片常可见明显中脉和纵向叶脉;具体形态应与来源明确的照片和实物对照。[4]
叶舌、叶耳和叶枕位于叶片与叶鞘的交界附近,却不是同一个结构。叶舌是内侧的膜状附属物;叶耳位于叶鞘上缘侧部,其有无和形态会变化;叶枕又称肥厚带,是交界处可辨认的区域。观察内外两面,比用一个视角笼统标注更可靠。[5]
TVD叶是最上位已经充分展开且可见叶枕的叶,常作为规定观察叶位的一种方法。UF/IFAS的佛罗里达营养诊断体系使用这一叶位,并说明是否保留中脉会改变分析结果。不同叶位、取样部位和处理方法的检测数字,不宜直接套用同一解释标准。[11]
本章叶片实拍显示外形、中脉和纵向叶脉;它没有露出叶舌与叶耳。交界处的结构因此另用原创示意图解释。拍摄新的识别图时,宜保留叶鞘附着位置、交界处正反面和比例尺,并注明叶龄与品种身份。
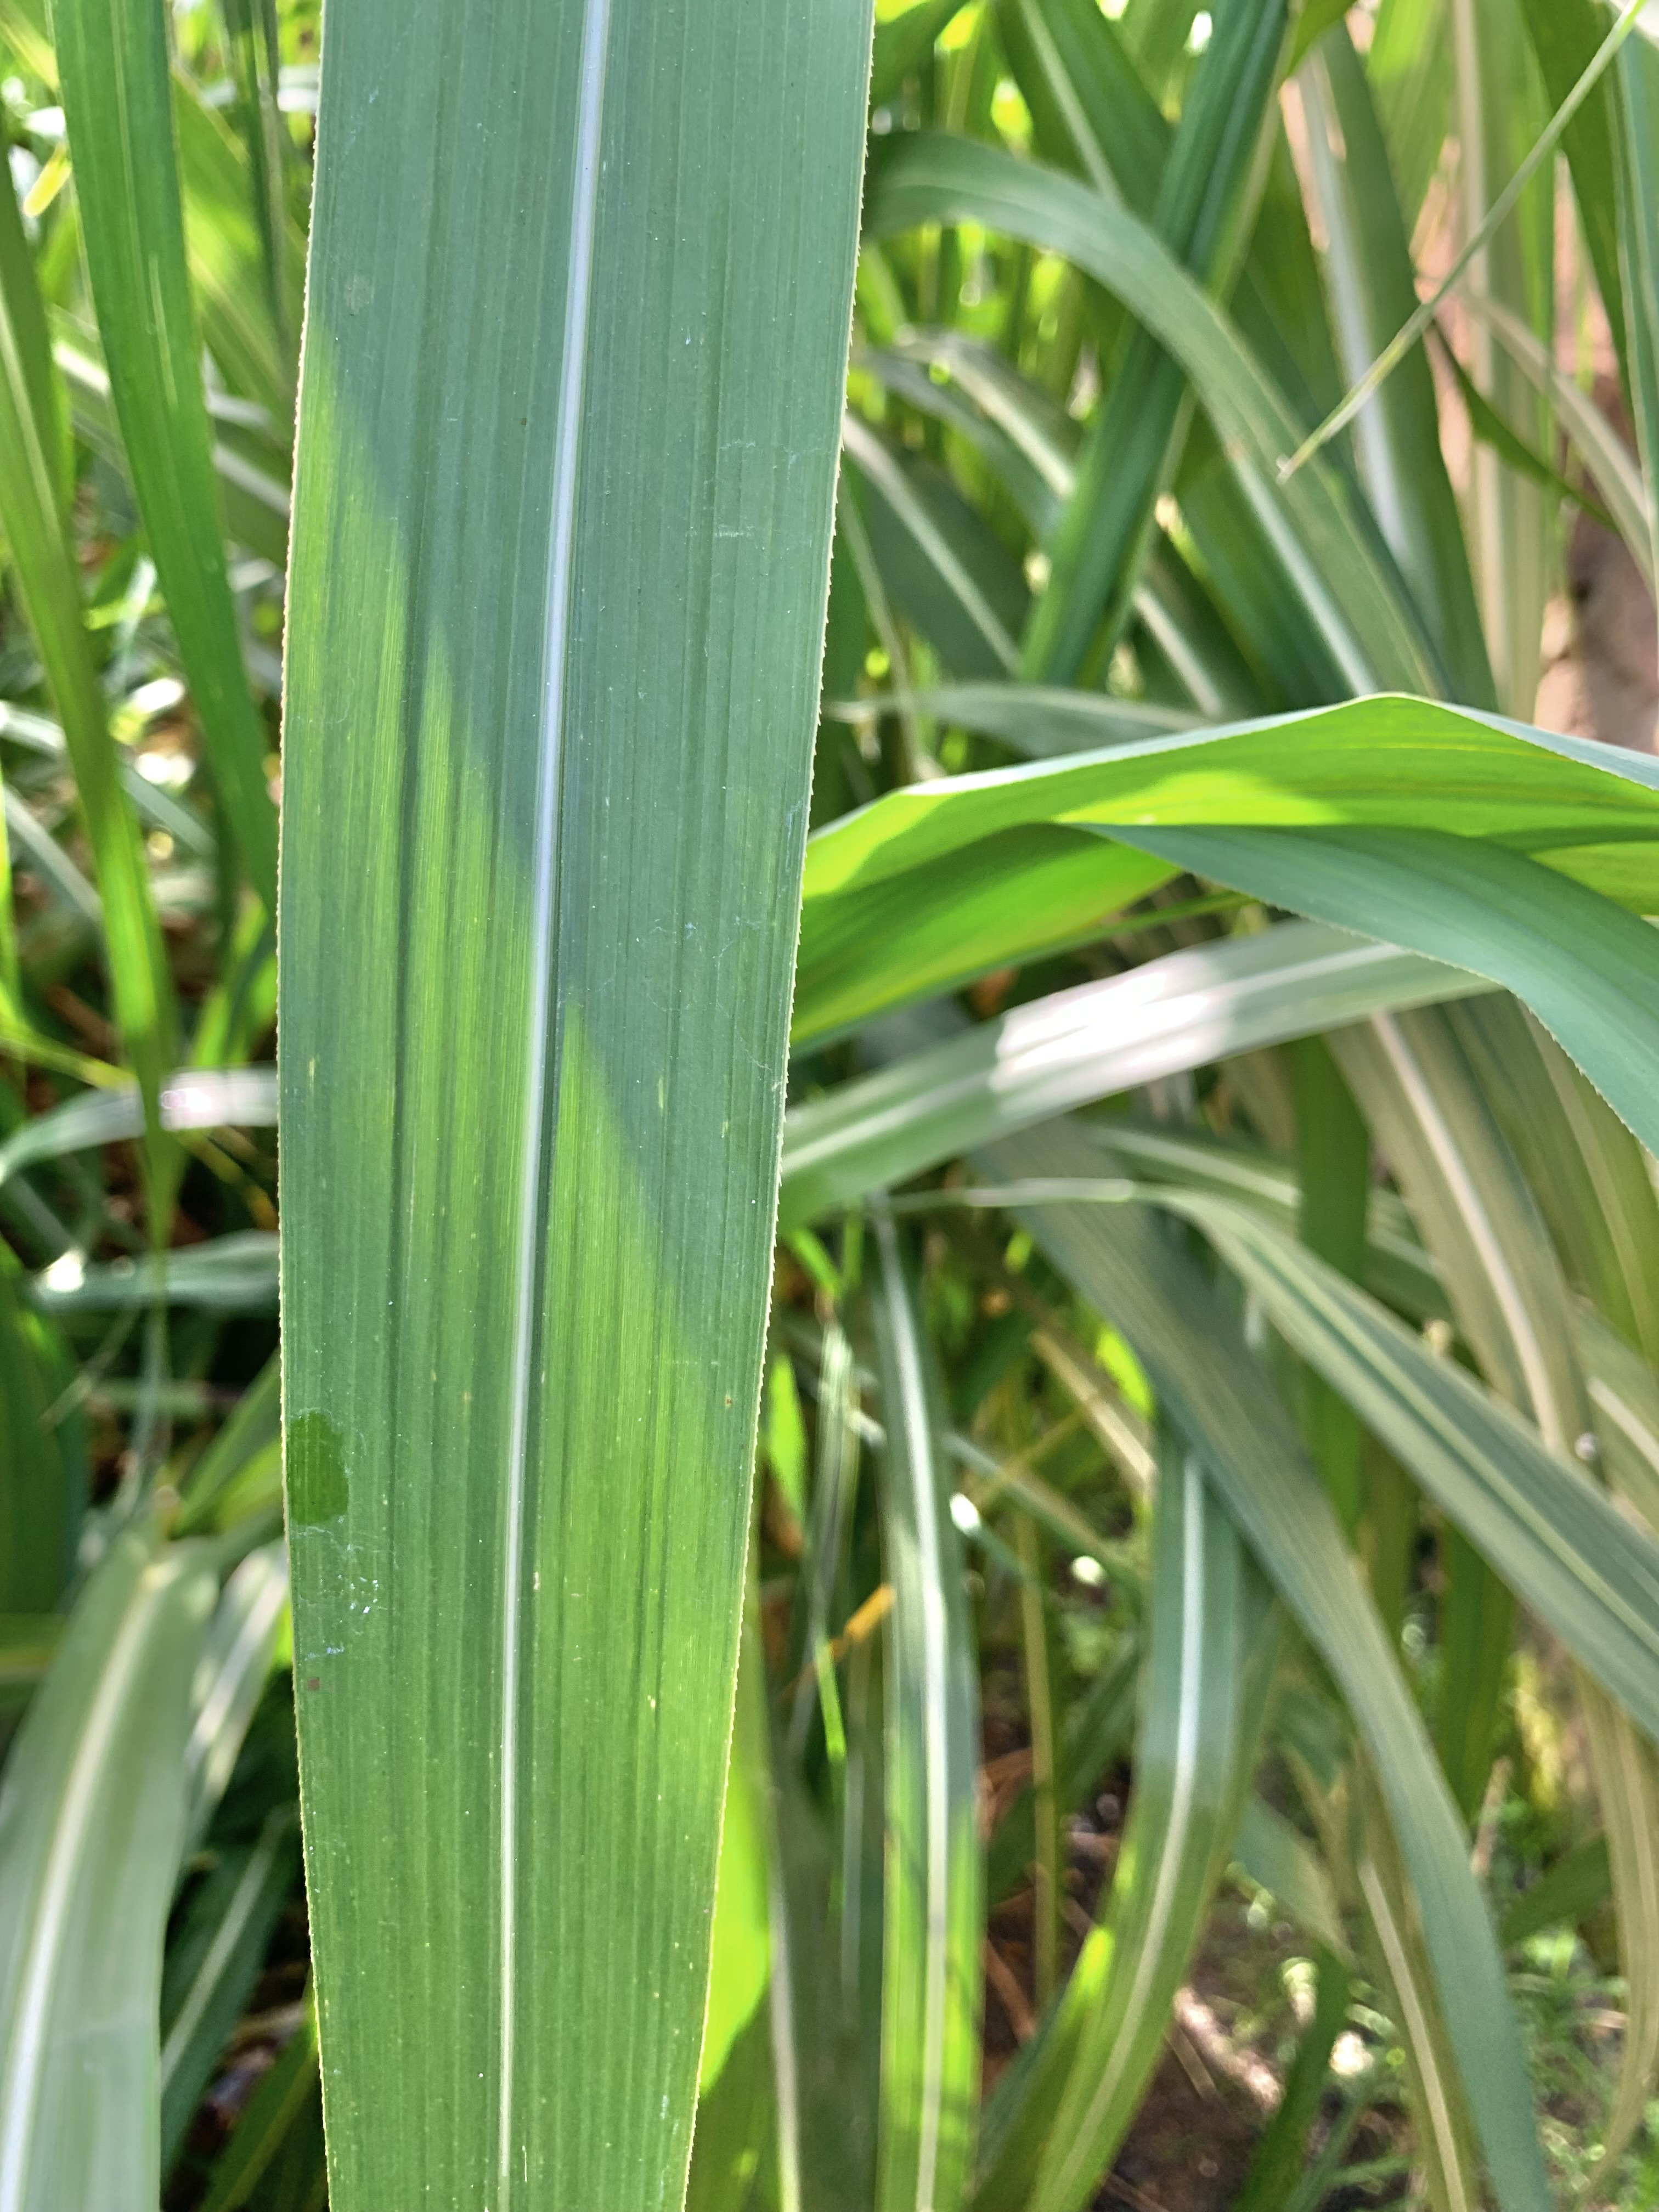
The blade and sheath are the main parts of a leaf. The ligule, auricles and dewlap occupy different positions at their junction. A blade photograph does not necessarily show these smaller structures. The top visible dewlap leaf is a useful reference position, but diagnostic results require a matching sampling protocol.
返回本篇目录光合作用与储糖:碳怎样进入蔗茎
Photosynthesis and sucrose: from carbon capture to storage
把碳固定、运输、利用与储藏分别说明,才能理解甘蔗的甜味。
甘蔗属于C4光合植物。“4”指初步固定碳时形成的有机酸含四个碳原子。Hatch和Slack的甘蔗叶片示踪试验观察到,标记碳先进入四碳酸,随后进入其他中间产物及糖;C4并不意味着只有四步反应。[17]
叶肉细胞与维管束鞘细胞在碳浓缩过程中分工协作。四碳酸携带的碳在维管束鞘细胞内以CO2形式释放,供后续同化反应利用。Hua等2024年对割手密材料的研究进一步分析了NADP-苹果酸酶途径及其调控;这类分子证据解释机制,不能单独证明某项田间增产效果。[13, 18]
成熟叶片供应同化物,韧皮部将其输往生长或储藏的器官。蔗茎的薄壁组织能积累蔗糖,但根、生长点与幼叶也需要碳。运输遵循源与库的关系,不是全株只向下的一股“糖水”。[19, 22]
不同节间的发育年龄不同。Glassop等对Q117进行代谢分析,观察到较老茎段较高的蔗糖积累和不同的代谢特征。这个结果支持按节位研究积糖;它并不要求每株甘蔗由梢到基严格、等幅地逐节变甜。田间比较应同时保留品种、蔗龄、节位和测定日期。[20]
C4 denotes four-carbon intermediates in initial carbon capture. Mesophyll and bundle-sheath cells cooperate before assimilated carbon is allocated among growing and storage tissues. The phloem transport pathway and the stalk storage compartment are distinct. Internode age matters, and results from one cultivar do not establish a universal sugar gradient.
返回本篇目录芽与分蘖:一丛甘蔗怎样建立
Buds and tillers: how a stool develops
从芽茎的发生来源理解蔗丛,才能正确统计数量。
种茎上的芽形成初生茎,初生茎基部的腋芽可以形成分蘖。分蘖继续发育出茎叶及根系,使原来一个起点形成多条芽茎轴。因此,分蘖是芽形成的新茎,不能画成根尖直接变成了蔗茎。[3]
分蘖的启动与后续生长是连续过程。Yan等以桂糖42为试验材料,分阶段采集地下分蘖芽,观察其由早期生长到出土的变化及表达谱差异。试验可以帮助提出调控机制,但单一品种的候选基因关联还不能视作所有蔗区通用的增产方法。[12]
“多少株”需要先规定计数单位。一段多芽种茎可以萌出多个初生茎;一个蔗丛中又有不同代次、不同年龄的分蘖。某日数到的总分蘖数与最终收获茎数不同,因为调查对象和时间不同。生产调查应把每丛、每米行长与每平方米的计数分别记录。
植物学观察宜追踪茎基部连接、发生顺序和存活状况。只看冠层上端,很难判断相邻茎究竟来自同一蔗丛还是不同种植起点;需要定位基部并保留样带或地块记录。
表03 三个观察尺度
| 尺度 | 典型记录 | 容易混淆之处 |
|---|---|---|
| 单根芽茎 | 茎龄、节位、芽体与叶位 | 不能代替整丛 |
| 蔗丛 | 主茎、分蘖及基部连接 | 多茎不等于多粒种子 |
| 田块或样带 | 单位行长或面积的有效茎数 | 应记录面积、时间与样本数 |
Tillers arise from basal buds and form their own shoot structures. A stool contains connected shoots of different ages, so a tiller count is not automatically a count of harvestable stems. State the observation date and denominator: per stool, per metre of row or per unit area. Molecular studies help explain development but require separate field validation.
返回本篇目录花序、颖果与种子:有性繁殖的结构
Inflorescences, caryopses and sexual reproduction
能看到蔗花、能够授粉和形成可萌发种子,是不同结果。
甘蔗并非不会开花。转入生殖发育后,茎顶可形成分枝开展的圆锥花序,英语常称arrow。花序由许多小穗组成;成对小穗中有柄与无柄的小穗并列,丝状毛形成蓬松外观。远景照片展示的是整个花序,并不直接证明结实或花粉活力。[13]
授粉受精后可形成颖果,这是包藏种子的微小干果。育种采收的絮状材料常称fuzz,其中还含颖壳、毛及其他花部残余,有些小穗并没有发育成颖果。Diniz等在RB92579参与的杂交试验中,逐一检查小穗是否有颖果,并分别测定萌发和幼苗表现;“絮状物很多”不能替代这些测量。[15]
花诱导、抽穗、花粉可育和种子形成应分别记录。Hale等对HoCP 96-540开展三年研究,在相同人工光周期程序下改变营养供应,抽穗比例和时间仍出现差异。因此,不能把某个试验中的日长数值当作全球甘蔗统一的开花公式。[16]
有性繁殖可产生新的遗传组合,是育种选择的重要途径。商业扩繁则主要保留选定无性系的组合,使用种茎或苗等材料。两条路线的结构基础不同,目的也不同;这正是下一单元需要区分的概念。
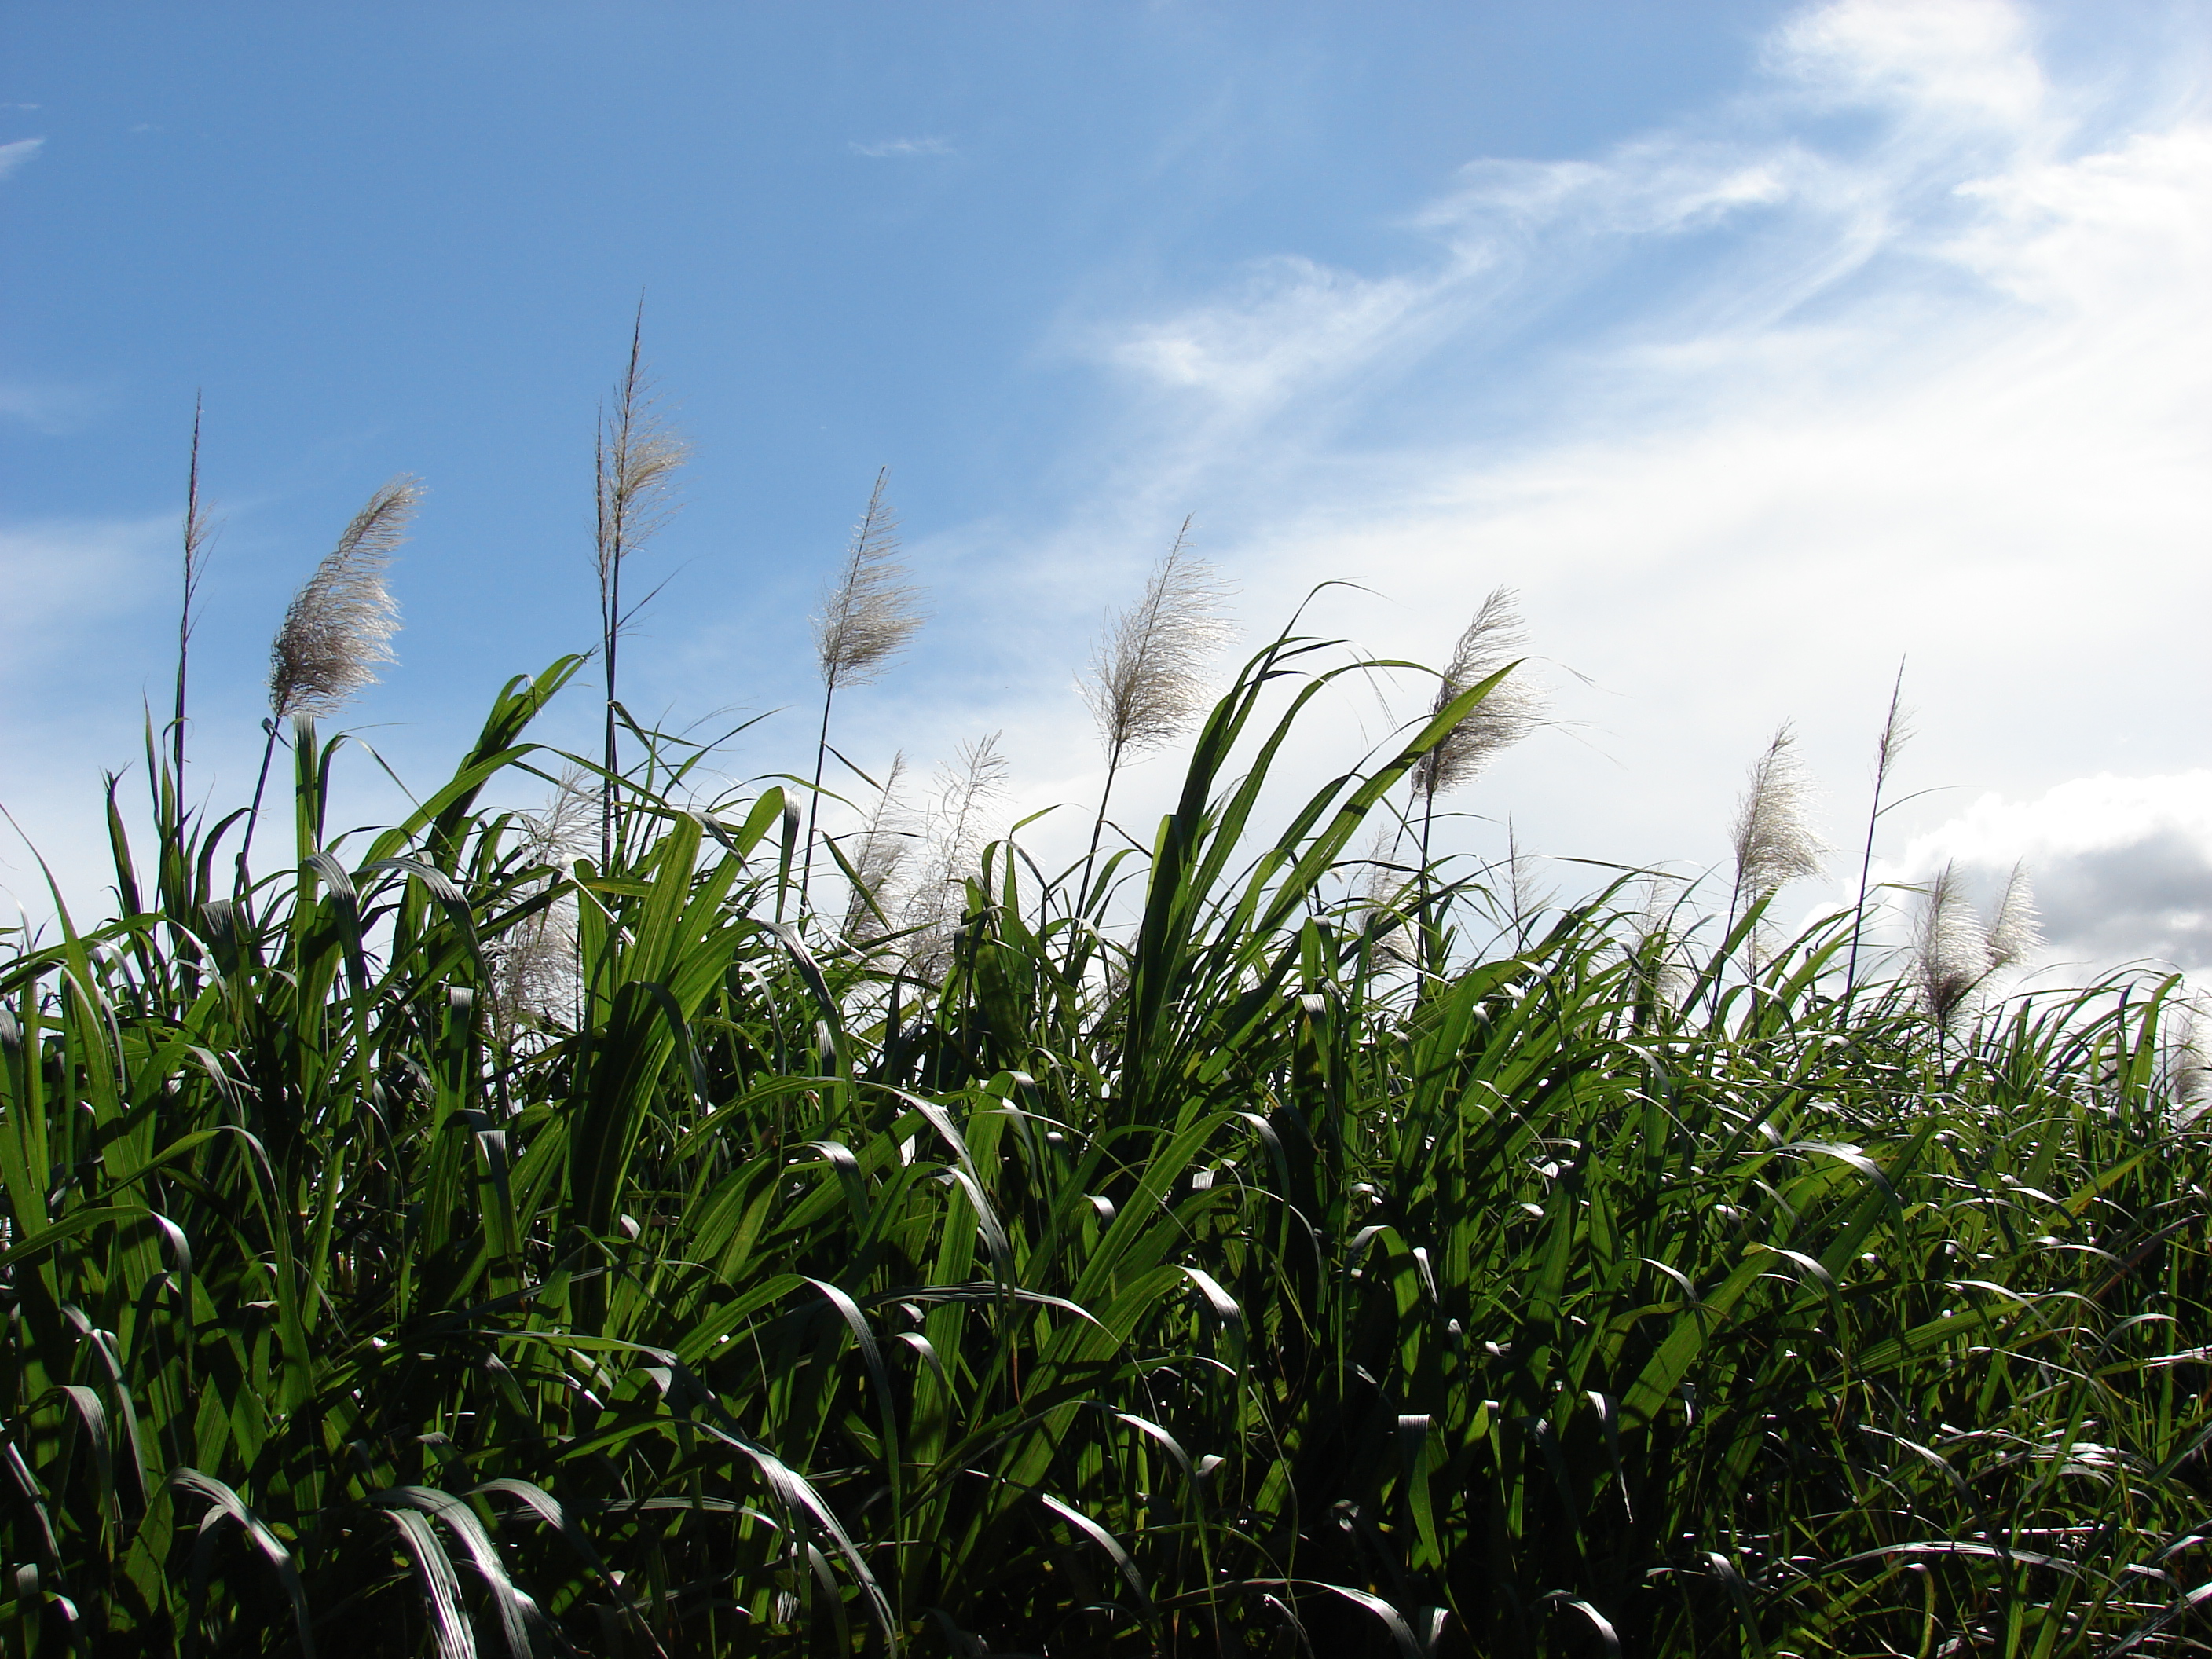
The terminal panicle bears many spikelets. A caryopsis is a small dry fruit containing the seed, while fuzz includes floral coverings and hairs as well as any developed caryopses. Flower induction, visible panicles, fertility and germination are separate observations. Their environmental responses depend on the material and experimental conditions.
返回本篇目录繁殖与宿根:保留品种的两种生产起点
Vegetative propagation and ratoon renewal
新植从繁殖材料建立,宿根从收获后保留的活蔗蔸再生。
生产上所说的“种蔗”或“种茎”通常是带芽的茎段。芽萌发形成新梢,属于营养繁殖;由颖果中的种子萌发形成的实生苗属于有性繁殖后代。词语中的“种”并不意味着所用材料就是植物学种子。[4, 15]
新植蔗需要建立新的植株及根系。收获后,保留在土中的活蔗蔸、基部芽和部分原有根系,则能作为宿根再生的起点。宿根不需要先开花结实,也不意味着原有每条根都永久存活。[6, 14]
Ball-Coelho等在巴西的新植与宿根研究中记录了收获后的部分根系死亡,并指出根周转的精确估计受到观测方法限制。结合新芽茎产生新根的过程,应把宿根看作保留组织与更新组织共同参与的再生,而不是旧根原样重复使用。[14]
评价再生,应分别观察芽是否存活、新茎是否出现、新根是否建立,以及新茎是否继续长成可收获茎。具体留蔸高度、宿根轮次和补苗措施还需结合当地品种与管理体系;本章先提供判断这些问题的器官基础。
表04 种茎、实生苗与宿根
| 起点 | 主要生物过程 | 常见用途 |
|---|---|---|
| 带芽种茎 | 原有芽长成新芽茎 | 选定品种的营养扩繁 |
| 有性种子/颖果 | 种子萌发形成实生后代 | 育种选择 |
| 收获后活蔗蔸 | 保留基部芽再生 | 宿根生产周期 |
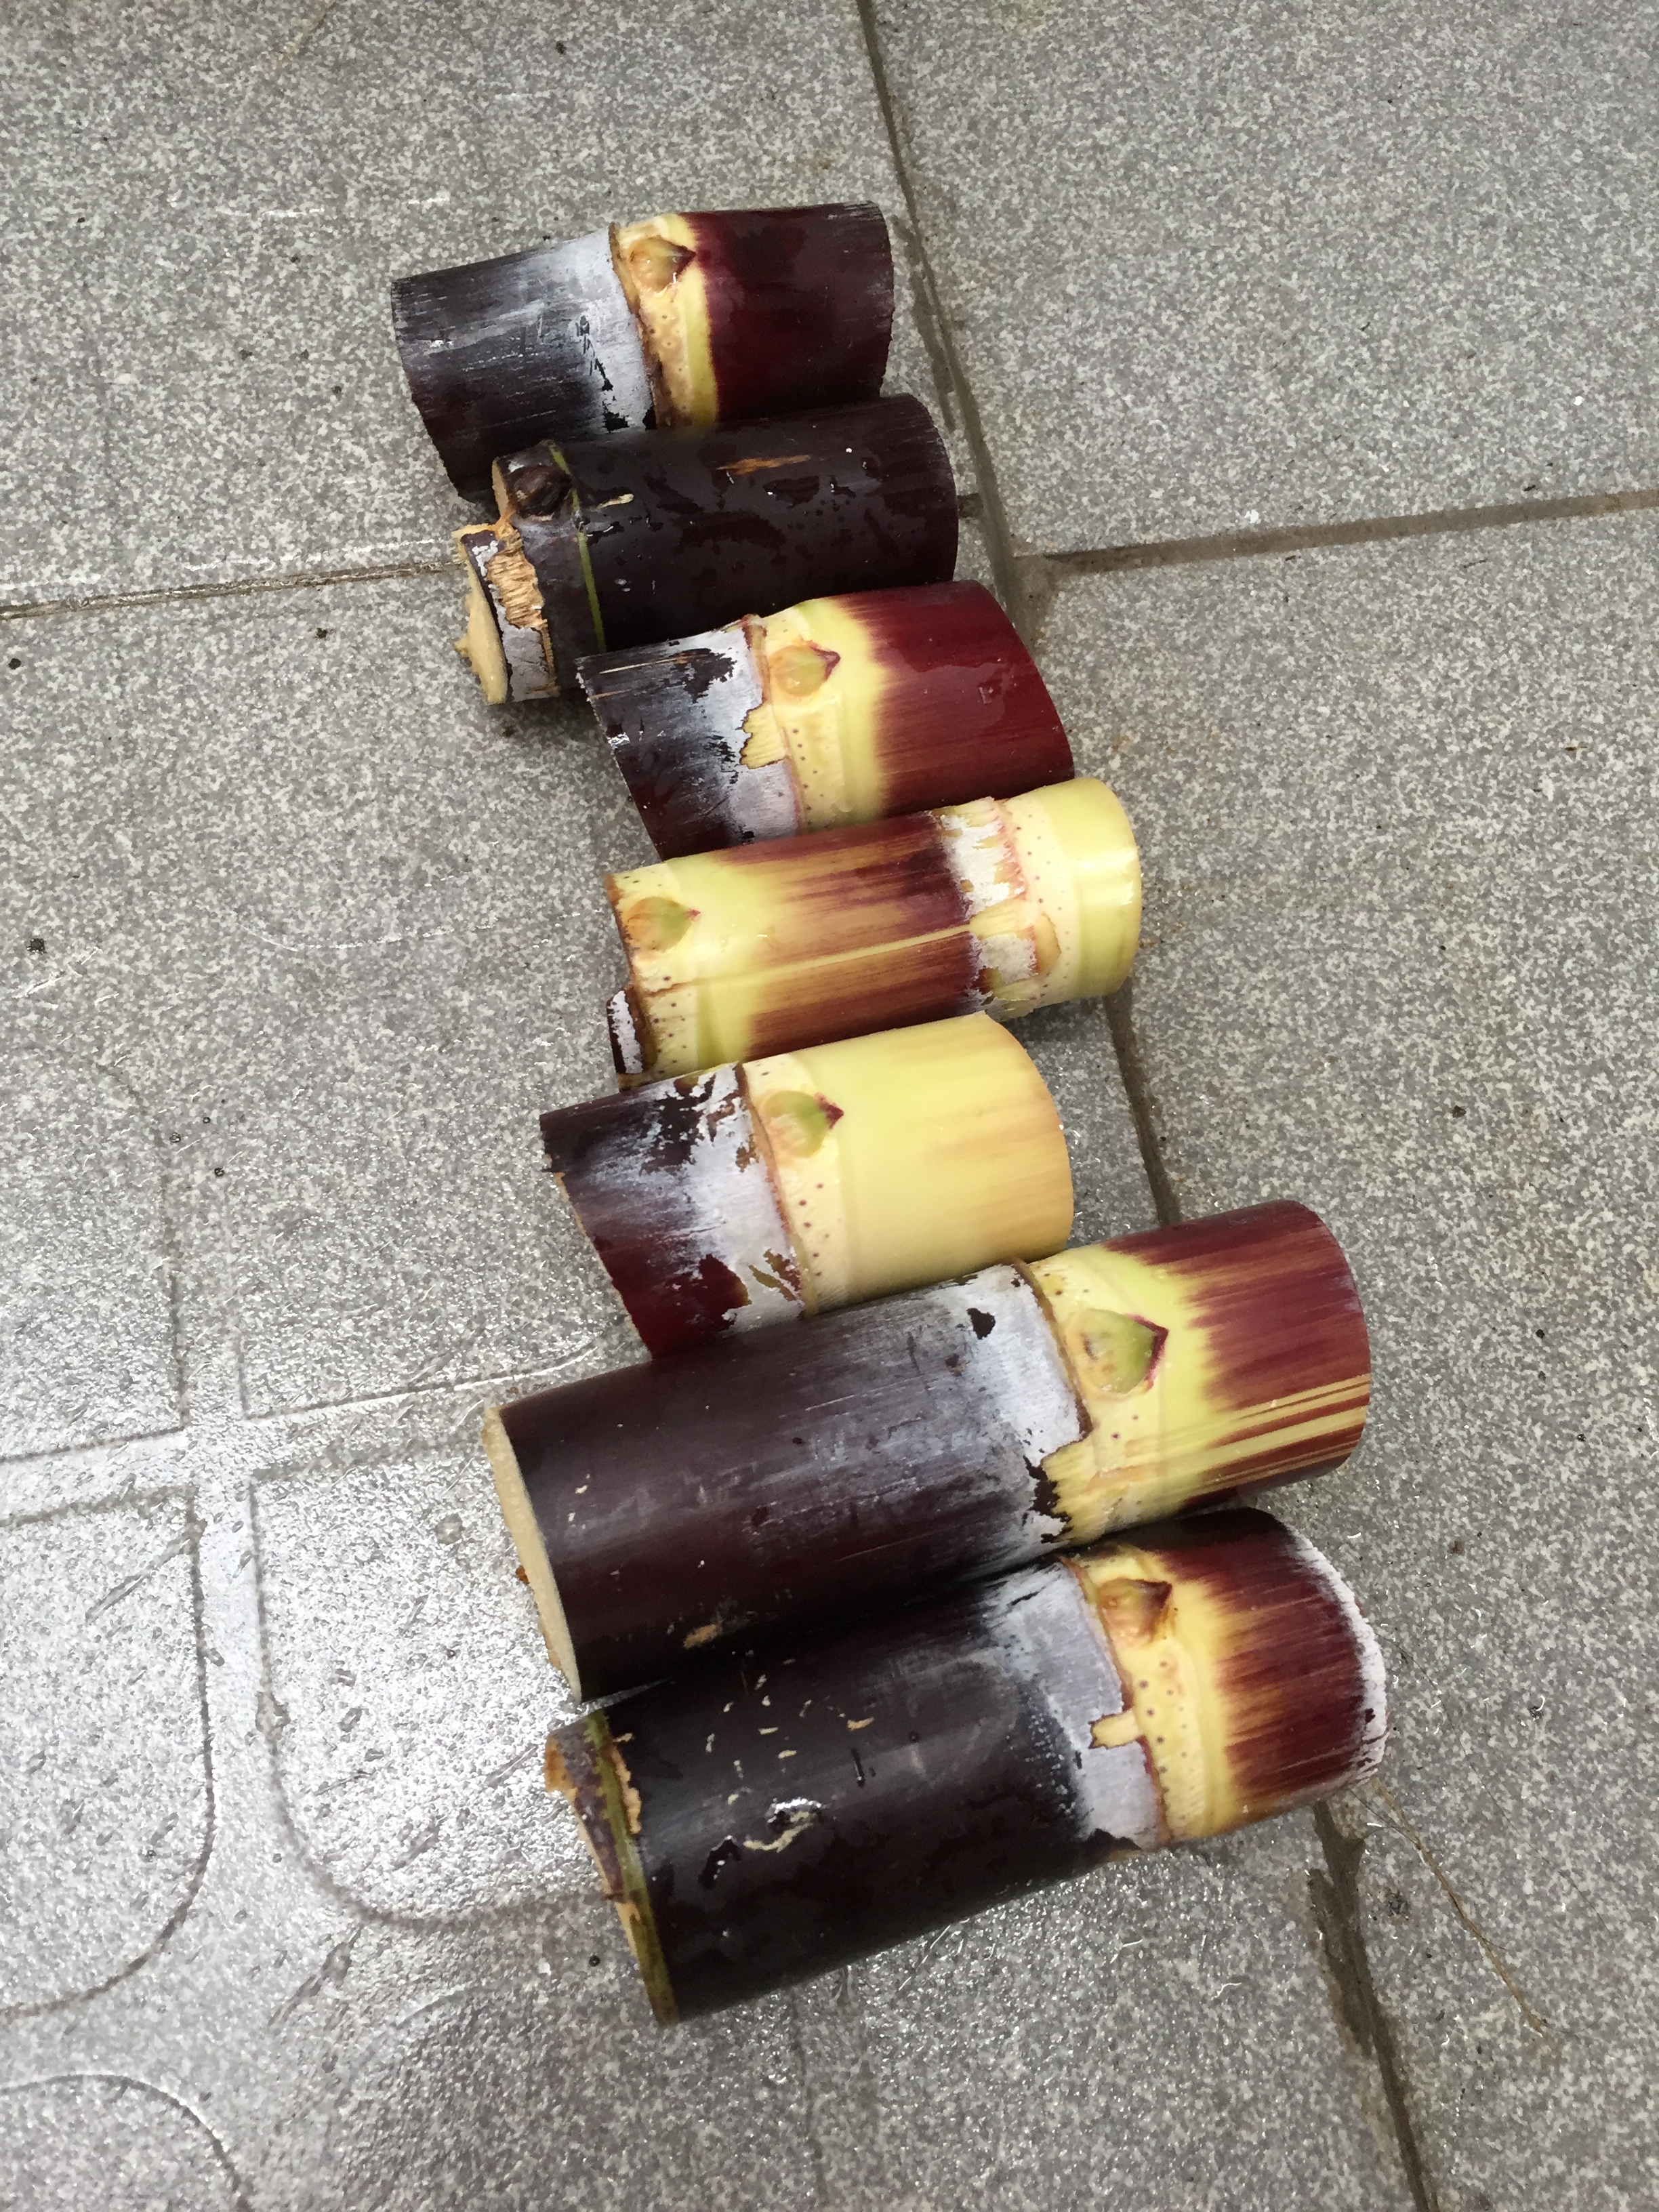
A sett is a piece of stem bearing buds, not a botanical seed. Plant cane establishes from newly planted material, whereas ratoon cane regenerates from living stools after harvest. Some old roots persist while others die and new shoots develop new roots. Assess bud survival, shoot emergence and sustained growth separately.
返回本篇目录长高、积糖与开花:三种不同的发育判断
Growth, ripening and flowering
使用“成熟”一词前,先说明正在判断哪一个过程。
甘蔗的器官并非在同一天完成生长。植株可以继续形成新叶、伸长幼节间,同时较老节间发生结构和储糖变化。观察到某一片叶已展开,不能直接推出整株已达到适收状态;同一根茎上也存在不同发育年龄的组织。[6, 20]
作为糖料作物,生产适收判断关注蔗茎产量、可回收糖分和当地加工安排等共同结果。UF/IFAS报告的佛罗里达五地点、四季试验,利用不同日期的每吨甘蔗产糖量建立品种成熟曲线。品种的积糖速度和相对表现随季节而变,说明“早熟”与“晚熟”需要放回当地环境中比较。[21]
开花是生殖发育,抽穗日期是其观察指标之一。它与积糖可能有关联,却不能替代糖分测定;很少自然开花的商品蔗也不必等待抽穗才能收获。同样,在育种设施中诱导出了花序,不等于已经证明可回收糖产量提高。[16, 21]
本章使用“发育状态—测量指标—应用目的”三个栏目来组织成熟信息。地区版可再加入品种、种植季、天气和成熟检测结果,避免用固定天数或固定月份覆盖所有蔗区。
表05 成熟判断先明确对象
| 观察层次 | 需要回答的问题 | 主要边界 |
|---|---|---|
| 器官生长与发育 | 叶是否展开、节间是否伸长? | 外观不能直接确定最高糖分 |
| 积糖与生产适收 | 糖分随品种和日期怎样变化? | 外地月份不能直接照搬 |
| 生殖发育 | 是否诱导、抽穗、授粉结实? | 抽穗不等于最佳收获期 |
Organ development, commercial ripeness and reproductive development are different endpoints. Local maturity curves depend on measured sugar accumulation and production context. Flowering is not a universal harvest signal, and trial calendars should not be copied unchanged to other regions.
返回本篇目录从实物到记录:怎样观察一株甘蔗
Observing and documenting a sugarcane plant
让文字、图片和测量对象一一对应,形成可复查的植物学记录。
观察先从种源和环境开始,再进入器官细节。记录品种是否确知、地点、日期、种植或收获后的时间,以及新植或第几季宿根;无法确认的字段应留作未知。之后固定观察尺度,依次拍摄田块、蔗丛、单茎与局部结构。
本章建议的一套照片包括:全株、茎基部、带芽茎节、叶片与叶鞘交界、必要的根部或花序。近照放入标尺,注明叶位、节位和观察方向;显微图保留比例尺与制片信息。形态比较的部位统一原则可参照UPOV描述方法,具体检测仍应采用相应地区或实验室协议。[5, 11]
记录倒伏时,应区分根部锚定变化、茎弯曲和茎折断,并分别拍摄基部及受损部位;这些是后续农艺和机械研究的问题入口。单张照片不能确定倒伏原因,也不能证明一种割台能在所有倒伏形态下完成喂入和切割。
本节建立植物器官和发育的共同语言。起源和祖源转入既有历史章节,品种选育转入育种栏目,田间管理与宿根措施转入栽培栏目,收割机设计则应把本节识别出的对象转化为可测量的试验项目。
表06 最小观察记录
| 项目 | 建议内容 |
|---|---|
| 材料与时间 | 品种/未知;地点;拍摄日期;新植或宿根轮次 |
| 观察尺度 | 田块、蔗丛、单茎或具体器官 |
| 茎 | 节位、芽、根带、叶痕、损伤位置 |
| 叶 | 叶位;叶片;叶鞘;交界正反面 |
| 根 | 发生位置;采样深度与方法;是否完整 |
| 花与种子 | 花序、花粉、颖果、萌发分别记录 |
| 影像与测量 | 标尺、方向、制片方法;实测值与单位 |
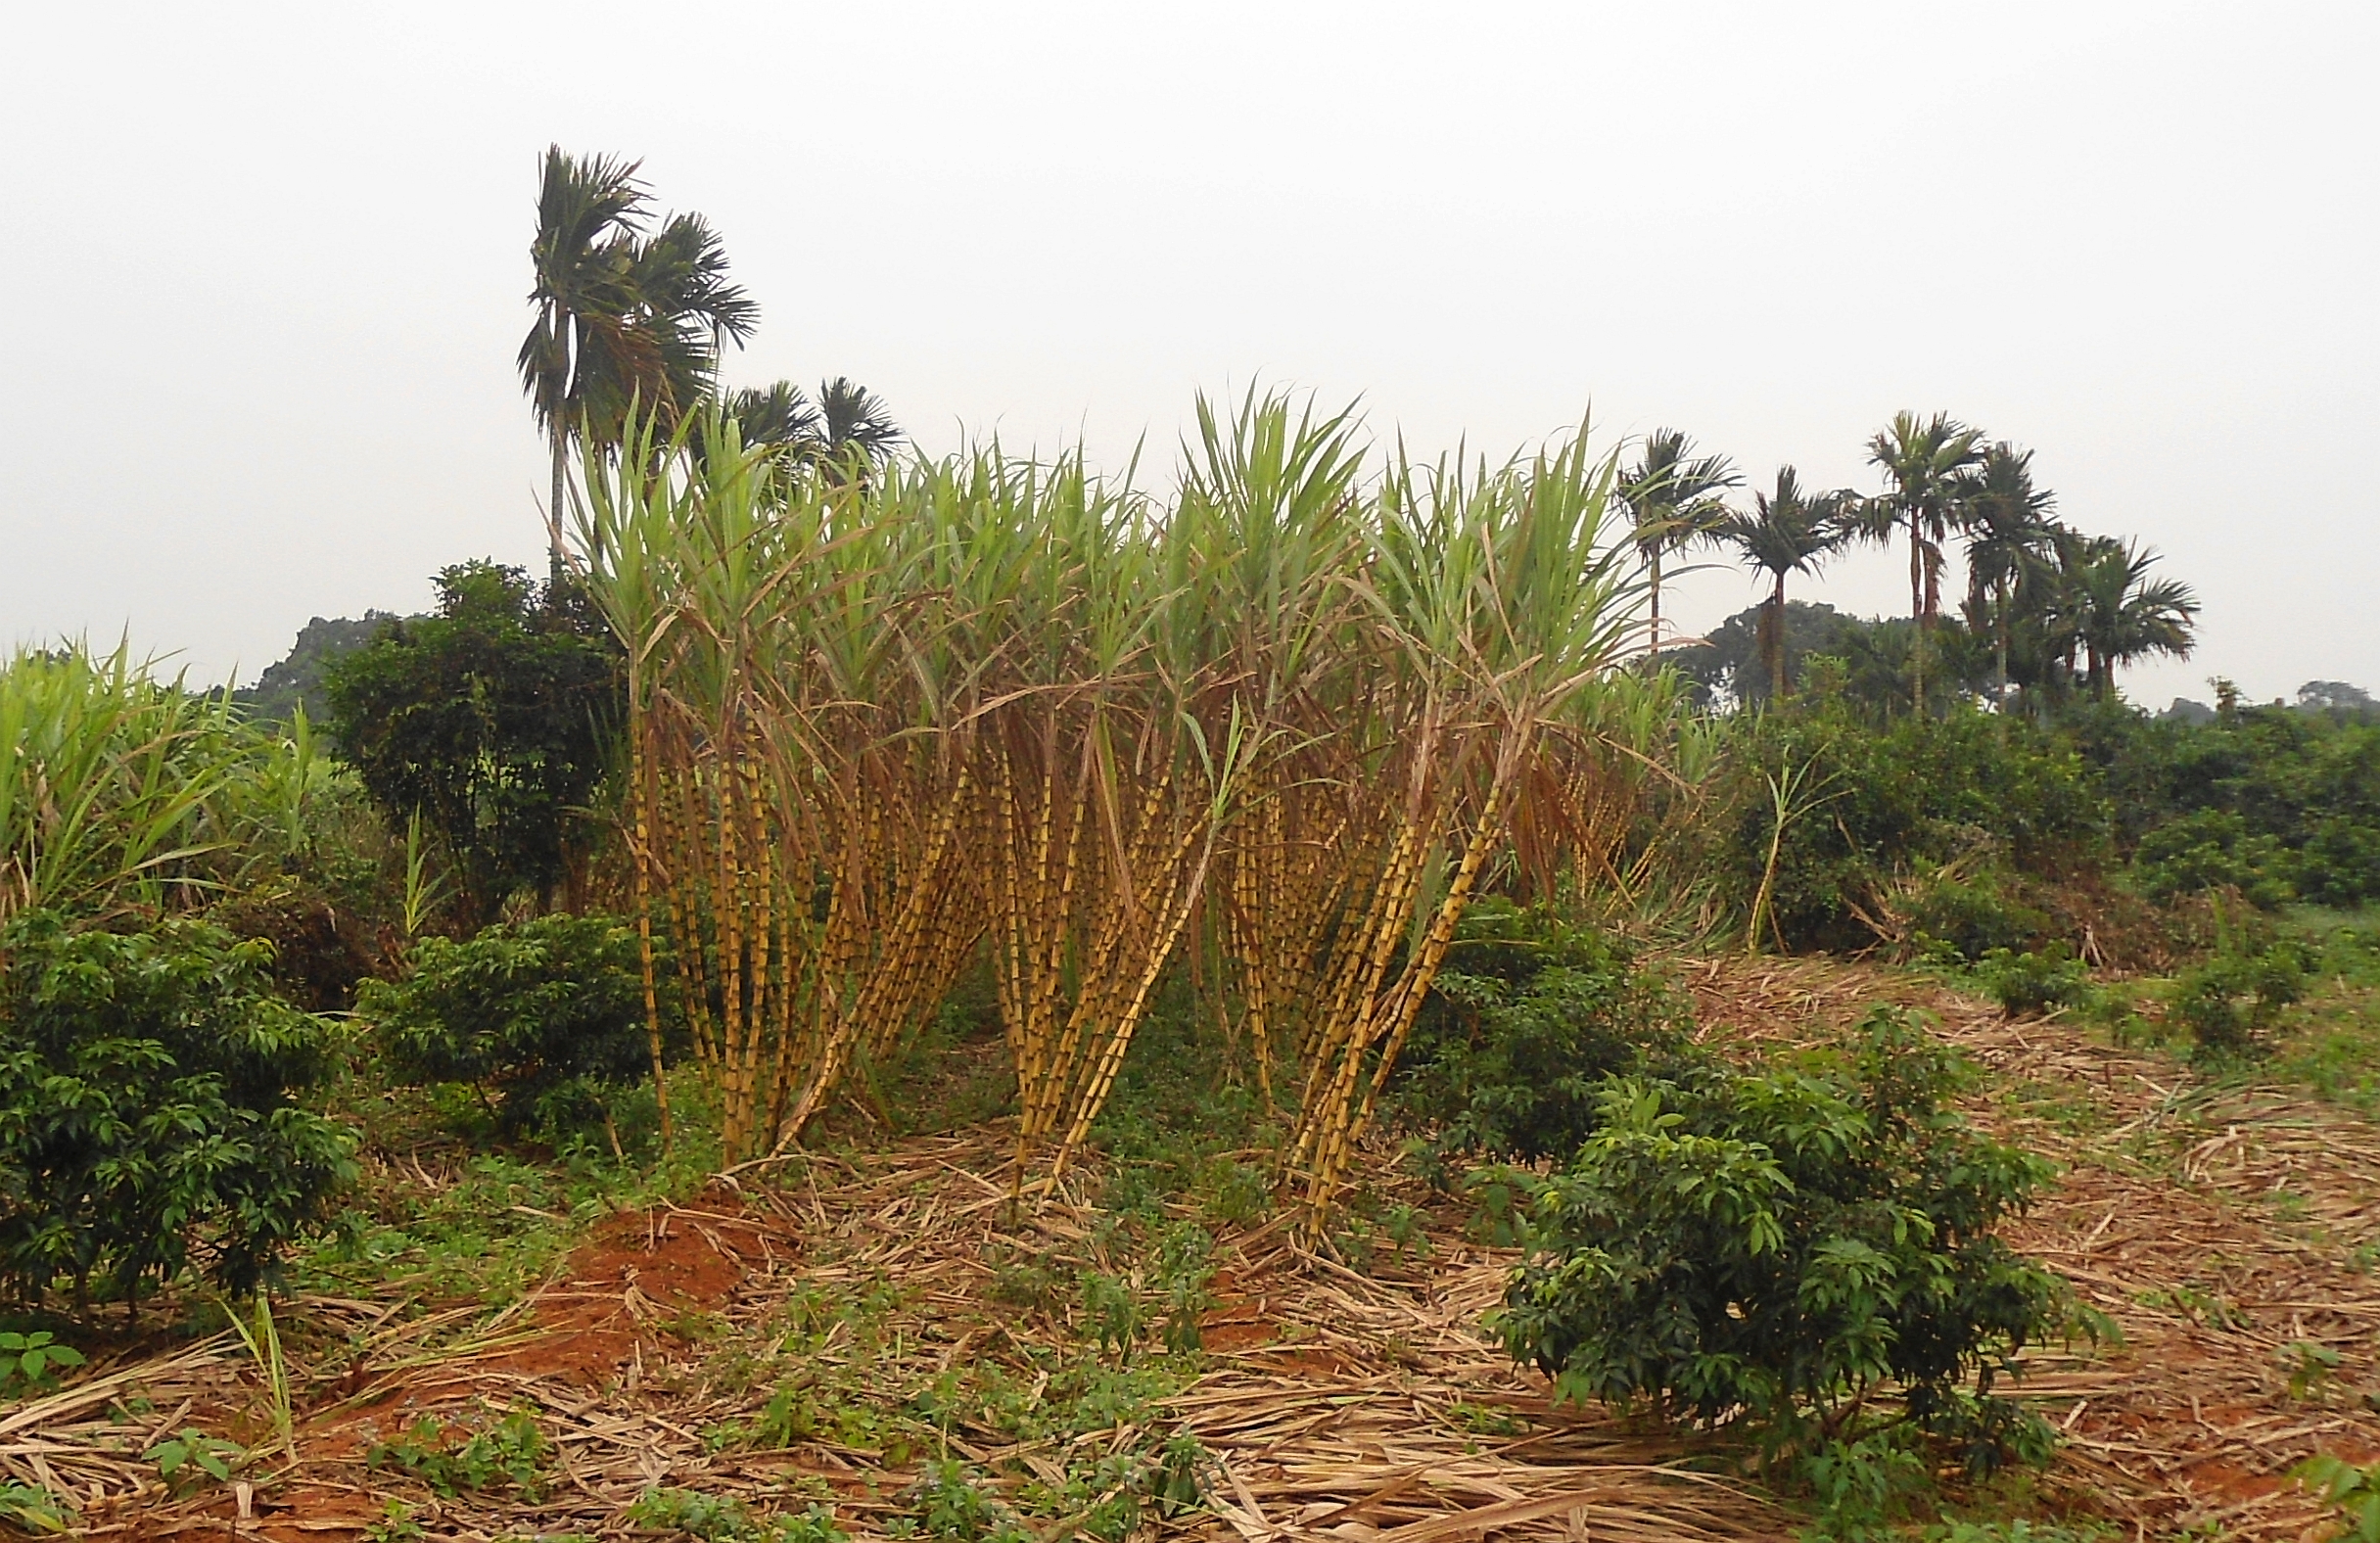
Begin with provenance, date, crop cycle and the observation scale. Photographs should retain organ position, orientation and a scale where appropriate. Distinguish what is visible from what must be measured. Botanical records provide the context for later agronomic and engineering tests, including different forms of lodging.
返回本篇目录根系内部:吸水通道与低氧环境中的组织重塑
Inside the root: water pathways and tissue remodelling under low oxygen
根的数量、长度和颜色,只描绘了根系的一部分。要理解同样湿润的土壤中甘蔗为什么会表现不同,还须进入根的内部,区分吸水的径向路径、木质部的轴向运输,以及皮层中的气体通道。三者相互联系,却不能用同一张横切片或同一个指标代替。
13.1 纵向年龄与横向组织是两套坐标
沿根尖向后观察,细胞经历分裂、伸长和分化;同一条根上的不同距离段,因而不是可随意互换的样品。根毛是表皮细胞的外伸,侧根则从根内部组织发生,两者不能按粗细混为一类。横向观察时,应依次辨认外围组织、皮层、内皮层和中柱,再在中柱中区分木质部与韧皮部。甘蔗根通气组织研究所用的分段切片,正是同时控制纵向位置并比较横向变化。[23][26]
实际取样先注明根系来自原种茎还是新梢,再区分所取的是根轴或侧根,并记录分枝级次、根径和距根尖距离。若把一条较老、较粗的根与另一条刚伸长的细根直接比较,观察到的差异可能首先来自发育阶段,不能立即归因于品种耐涝性。
13.2 吸水先横穿组织,再进入长距离运输
水从土壤进入根后,可以沿细胞壁和细胞间隙运动,也可以经过细胞膜与细胞内部相连的路径。内皮层的凯氏带限制细胞壁通道中的自由绕行,使进入中柱的水和溶质受到膜运输过程的选择。进入木质部后,水的长距离流动与土壤—根—叶之间的水势差相联系。根毛扩大接触面积,但根多并不自动等于整株输水能力强。[26]
因此,根系图像适合回答“接触了多少土体”“哪些组织形成了空隙”,不能单独给出水流量。研究吸水功能,至少应把土壤含水状态、叶片水势和实际蒸腾背景放在一起解释;测得导水能力时,还须说明按整根、根质量还是表面积归一化。
13.3 通气组织不是把皮层全部掏空
甘蔗根中的溶生通气组织包含发育过程中形成的气腔。Leite 等将根分段,结合微断层扫描、细胞壁化学和免疫标记,观察到细胞分离、部分细胞死亡及细胞壁成分的选择性变化;气腔之间仍保留组织联系。混合键 β-葡聚糖及部分果胶组分发生变化,而其余壁材料组成残留结构。[23]
这说明“有空隙”不等于“腐烂”。识别时应检查气腔的位置和连续性、相邻细胞与中柱是否完整,并排除切片撕裂形成的假空洞。研究中的气腔面积和出现距离属于特定材料与取样条件,不能规定为所有甘蔗根的固定比例或发育时钟。
还须区分气腔与导管腔:前者位于皮层的通气组织中,后者属于中柱的输导结构。一个横切面只能显示该位置的面积,不能单独证明整条根的气腔连续性;原研究结合微断层观察,正好补充了这一维度。计算“气腔比例”时,分母应明确是皮层面积还是整个根截面面积。[23]
13.4 组织发育证据与调控候选须分开
在 SP80-3280 的根段研究中,靠近根尖的段与更后方的段呈现不同的通气组织发育状态。小 RNA 测序及靶标预测发现了与乙烯相关信号、细胞壁组织等过程有关的候选 miRNA。这里有两个证据层次:切片直接显示组织变化;表达量和预测配对提供潜在调控关系。[24]
后者尚不能证明某个 miRNA 单独决定田间耐涝。要把候选关系推进到因果解释,需要靶标验证、功能干预以及组织和整株表型的对应。因此,本章采用“可能参与调控”,不把组学富集结果写成已经完成的耐涝改造技术。
13.5 从低氧应答走向整株判断
土壤积水改变根际通气条件,但耐受结果还取决于持续时间、排水恢复、品种和土壤。美国农业部在佛罗里达泥炭质土壤蒸渗仪中比较了两个甘蔗基因型,设置短期淹水后排水的循环;叶片光合、蒸腾和气孔导度并非每次都降低,响应在年份和周期之间也有变化。[25]
这项结果支持按情境评价耐受,不能推导出甘蔗可以无限期浸水。根的解剖切片应与积水深度和时长、根际氧状态、排水后的新根形成及后续生长一起记录。可见通气组织是一条适应线索,而是否维持产量必须由完整生长过程检验。
在试验安排上,还应把“处理期间维持功能”与“解除处理后恢复功能”分开评价。相同终点株高可能掩盖不同的受损和恢复轨迹;设置处理前、处理末及恢复后的重复观察,有助于避免仅凭一次挖根就判断根系耐受机制。这里属于本章提出的研究建议。
从根系结构到功能:观察能回答什么
| 观察或测量 | 可支持的判断 | 仍需补充的证据 |
|---|---|---|
| 同类根、同一距根尖位置的切片 | 皮层、中柱及气腔组织状态 | 重复植株、取样位置与制片损伤排除 |
| 根长、根径、根毛与侧根分布 | 根与土体接触的空间结构 | 实际土壤水分分布及活根比例 |
| 根导水能力与叶片水势 | 给定条件下的输水功能 | 测量方法、归一化基准和蒸腾背景 |
| 气腔、候选 miRNA 与耐涝表现 | 结构与分子反应的关联线索 | 功能验证、低氧处理及排水后的恢复试验 |
Sugarcane roots must be interpreted along two axes: developmental distance from the tip and tissue position across the root. Radial water entry, axial xylem transport and cortical gas spaces perform different functions. Primary studies show selective cell-wall remodelling during aerenchyma formation, with tissue connections retained between gas spaces. Expression patterns and predicted miRNA targets offer regulatory candidates, but do not establish individual genes as determinants of field tolerance. Flooding responses also depend on duration, drainage, genotype and soil. Anatomical observations should therefore be paired with hydraulic measurements, oxygen conditions and recovery records rather than used alone to predict crop performance.
返回本篇目录茎节到节间:发育梯度、木质化与力学行为
From node to internode: developmental gradients, lignification and mechanics
甘蔗的茎同时承担伸长、输导、储藏和支撑。理解它的力学行为,不能只量一个直径,也不能只测一份木质素含量。节位、组织在横截面中的分布、细胞壁成熟程度和试验条件,决定了我们实际上在比较什么。
14.1 一个正在伸长的节间也有内部梯度
茎尖形成的节与节间经过发育,逐步建立不同功能;处于伸长期的节间本身也并非均匀材料。Yanagui 等把能源甘蔗的一个伸长节间分为五段,结合组织学和转录组分析,发现从细胞分裂、原生木质部木质化到成熟维管束木质化的空间梯度。与细胞壁和生长有关的基因表达也随分段变化。[27]
这意味着把整个幼节间磨成一份样品,会混合不同发育状态。比较不同材料时,应同时注明从茎顶计数的节间序号、该节间是否仍在伸长,以及取样位于节间的哪一段。能源甘蔗的结果提供研究框架,不能代替所有糖用甘蔗的逐品种验证。
14.2 维管束、纤维和薄壁组织构成空间组合
横切面中的维管束包含输导组织,周围的纤维及广泛分布的薄壁组织共同构成茎体。研究 RB867515 与一份 S. spontaneum 材料的组织测量显示,两者在维管束占比、纤维特征和薄壁细胞大小等方面存在差异;同一茎的外部和内部也不能只凭“蔗皮”“蔗心”的生活用语视作均匀层。[28]
作解剖记录时,应分辨导管腔与纤维细胞,说明测量的是细胞壁厚度、细胞直径还是组织面积比例。茎节连接叶、芽和相邻节间,在研究设计中也应独立标记;只取节间的论文,不能直接给出茎节的组织比例或切割难度。
14.3 木质化有时间、位置和化学组成
木质化不是某一天整根茎同时完成的开关。上述两种材料在不同节间及不同组织中表现出不同的染色分布;一些纤维和薄壁组织的木质化差异,比整份样品的总木质素差异更直观。组织化学染色、整体化学定量和核磁分析回答的也不是同一个问题:它们分别强调分布、含量及组成。[28]
因此,图像颜色不能直接当作强度刻度。染色条件、切片厚度和反应所识别的化学基团都会影响显示效果。若要联系机械性能,应将同一节位、同一组织位置的结构观察与实际加载试验配对;仅有染色增强,尚不足以判断某品种更抗倒或更难切。
化学报告还要注明计算基准:按鲜组织质量、干组织质量或提取后的细胞壁材料表达,所得百分数并不等价。蔗汁水分和可溶性物质会改变整份样品的组成。讨论“木质素增加”之前,先核对分母、提取方法和节间发育阶段,才能区分真实的壁成分变化与样品比例效应。[28]
14.4 压、弯、剪是不同的试验问题
一项针对三个甘蔗品种的研究,分别比较茎秆顶部、中部和基部,以及采后不同失水阶段的压缩、弯曲和剪切表现。作者报告,所测材料随着含水率降低,三类应力指标均有升高趋势;这一结果属于相应材料与试验装置的比较。[29]
需要区分力、应力和能量:力描述装置施加的载荷,应力还需要截面或相应几何假设,能量则与整个变形或切断过程有关。该研究采用材料试验机;其加载条件不能自动代表高速旋转刀具。茎粗、含水率、支承跨度、加载方向与速度都应随结果报告,不能只留下一个“甘蔗强度”。
同样重要的是记录破坏位置:试样是在节间弯折、夹持处压伤,还是沿组织界面开裂。装置接触处先发生破坏时,曲线可能更多反映夹具与材料的相互作用。将破坏照片和载荷曲线配对,是本章建议增加的解释步骤;它并不预设哪一种组织必然最弱。
14.5 把植物学转化为可检验的设计输入
对收割机或割铺机设计,合理的起点是建立样本矩阵:同一品种取基部、中部和上部,并将茎节与节间分开,保留新鲜状态和可追踪的含水率。再按用途分别做弯曲、夹持、剪切或切割试验。解剖学用于解释试样为何不同,力学试验用于确定这些差异在特定动作下意味着什么。[27][28][29]
抗倒伏还涉及植株高度、重心、根土锚固和群体环境,不能由一段蔗茎的断裂载荷独自判定。同样,刀具能切断试样,也没有完成对田间拾扶、输送、缠绕和损伤的验证。本节提出的是可检验的研究路径,不给出未经整机试验确认的设计定值。
结构与力学之间应建立的对应记录
| 层面 | 建议记录 | 避免的误读 |
|---|---|---|
| 发育位置 | 节间序号、伸长状态、段内位置;茎节另列 | 把幼茎和成熟茎当作同质材料 |
| 组织结构 | 维管束分布、纤维壁厚、薄壁组织及截面形状 | 把所有空腔都当成导管,或只看平均直径 |
| 化学与染色 | 方法、取样组织、染色条件或木质素定量基准 | 把颜色深浅直接换算为强度 |
| 力学与作业 | 含水率、加载模式/方向/速度、支承及几何假设 | 把材料试验数值直接作为整机切割定值 |
A developing sugarcane internode contains spatial gradients in cell division, wall formation and vascular maturation. Tissue proportions and lignification patterns vary between genotypes and sampling positions, so whole-internode chemical measurements cannot substitute for anatomical maps. Mechanical interpretation must also distinguish load, stress and energy, and specify moisture, loading direction, support geometry and speed. Comparative stalk tests provide useful experimental evidence, but their values are not universal machine-design constants. A practical research programme links matched tissue samples to bending, compression and cutting tests, while assessing lodging and field harvesting as broader whole-plant and machine–crop problems.
返回本篇目录从叶片切面到冠层:气孔、叶龄与水碳交换
From leaf anatomy to the canopy: stomata, leaf age and water–carbon exchange
一片绿色甘蔗叶并不是各处功能相同的薄片。同一叶片的基部、中部和尖端处于不同发育状态;不同叶位又经历不同的光照、温度和空气湿度。理解其光合与水分行为,需要把细胞位置、叶片年龄和冠层环境同时放进观察框架。
15.1 叶片解剖是功能分区,不只是辨认细胞
叶片横切面可以区分上下表皮、气孔相关空间、叶肉、维管束及其周围的鞘细胞。甘蔗的 C4 功能依赖细胞之间的分工,因此“叶脉多”或“叶片厚”本身不是完整的效率指标。叶脉间距、组织成熟及气体扩散条件,应与实际生理测定结合。[30][31]
表面观察与横切片也回答不同问题:前者有利于计数气孔和观察表皮,后者展示组织层次与相互位置。叶片皱折、切片斜切和取样位置变化都会影响看起来的厚度或间距。比较时应统一叶位和叶段,并保留原始比例尺;从不同放大倍数的图片直接比较大小没有意义。
15.2 同一叶片也有成熟梯度
Mattiello 等对 SP80-3280 的首片叶枕已露出叶片进行分段研究,发现基部、中部与尖端在光合能力、氮、叶绿素、糖和转录特征上存在差异;其中中段在该试验中表现出最高的光合速率。叶尖较成熟,并不意味着它在所有条件下总有最高的净同化。[30]
这为取样带来直接要求:气体交换、营养分析和组学样品不能只写“甘蔗叶”,而要记清叶龄与叶段。测得叶糖较高也不能单独证明即时光合较强,因为叶内糖的状态还受到消耗和输出影响。该研究使用特定品种和生长条件,不能将其叶段排序作为全球甘蔗的固定规则。
15.3 气孔密度、开度和导度不要混用
气孔密度描述单位面积有多少气孔;开度描述某一时刻孔隙状态;气孔导度则是气体交换的功能量。三者有关联,却不能互相替代。在上述叶段试验中,气孔数量差异并不足以解释全部光合差异。另一项甘蔗与 Erianthus 的受控干旱比较发现,材料间下表皮气孔密度和叶脉间距存在差异,而上下表皮的差异并不完全一致。[30][31]
因此,气孔拓印应区分上下表面,并与同叶位、同叶段的交换测定对应。瞬时内在水分利用效率常以净同化速率与水蒸气气孔导度之比表示;这个比值不等于整季产糖量除以灌溉量,也不能独自筛出田间最耐旱的品种。[31]
气孔张开有利于二氧化碳进入,同时提供水汽外流的通道;实际交换还取决于叶内外浓度差和周围空气。保卫细胞的状态可以在同一片叶的测量期间变化,已形成的气孔数目却是另一尺度的结构属性。因此,一张固定样品的表皮照片不能代表晴天、阴天和干旱过程中的全部功能。[26]
15.4 叶尖的吐水器不是普通气孔的简单复制
对甘蔗叶尖的扫描电镜和共聚焦研究,观察到吐水用的水孔,以及与其相联系的疏松组织和木质部。水孔在位置及周围表皮结构上有别于较远叶段的普通气孔。吐水是液态水排出;蒸腾主要涉及水以气态离开,两种现象不能只凭“叶片失水”混为一谈。[33]
这也是很好的显微观察案例:同一叶尖上应区分表面孔隙、内部输导组织及叶尖沟槽。原研究包含多个甘蔗材料,未能确定全部甘蔗显微样本的叶位,因此本章只用于说明该类组织的存在与结构,不能据此规定所有品种水孔的固定距离、数量或排水能力。
15.5 从单叶到冠层,空气环境也变了
随着冠层形成,叶片周围的空气并不总与冠层上方相同。Meinzer 与 Grantz 同时测单叶气孔导度和整冠层蒸腾,显示叶面及冠层边界层会限制水汽传输;若把较远处空气的湿度直接代入叶片蒸腾估计,会产生偏差。[32]
因此,不能将一片受光叶的速率简单乘以总叶面积,便声称得到了整田交换。冠层研究还要考虑受光叶与阴叶的比例、叶龄分布、气象测点和时间变化。观察叶色、叶角或叶片数量有助于描述群体结构,但要判断生产效率,仍须连接到实际的群体气体交换、干物质形成或产量记录。
叶龄也不能完全替代受光历史:上部叶与下部叶在年龄和光环境上常同时不同。要区分两种作用,可对匹配叶位进行可控光条件下的测定,再与原位测量比较;这是本章建议的对照思路。若没有这样的对照,应将结果描述为叶位间差异,而不是声称已经分离出纯粹的衰老效应。
叶片与冠层测量的尺度边界
| 指标或图像 | 主要描述对象 | 不能直接替代 |
|---|---|---|
| 叶片横切面 | 组织位置、叶脉间距和成熟结构 | 实际光合速率或整季产糖量 |
| 表皮气孔计数 | 单位面积的气孔数量与分布 | 测定时刻的开度或气孔导度 |
| 叶片气体交换 | 指定叶段、光温水条件下的即时功能 | 全部叶龄与整个冠层的交换 |
| 叶尖吐水观察 | 液态水排出及吐水器结构 | 蒸腾通量或长期用水效率 |
| 冠层交换测定 | 群体与大气之间的综合交换 | 任一单叶的解剖特征或独立贡献 |
Sugarcane leaf function varies within a leaf, among leaf ages and across the canopy. Developmental sampling studies demonstrate that the middle of a leaf can differ substantially from its base and tip in photosynthesis and metabolism. Stomatal density, aperture and conductance describe different properties; anatomical comparisons require matched leaf positions and physiological conditions. Apical hydathodes provide a distinct route for liquid guttation and should not be confused with ordinary stomatal transpiration. At canopy scale, boundary layers and local humidity modify water-vapour exchange, making simple multiplication of a single-leaf rate by total leaf area unreliable.
返回本篇目录C4 光合作用:从两类细胞的协作到可信的测量
C4 Photosynthesis: Cellular Coordination, Environmental Responses and Measurement
基础篇已经说明甘蔗利用 C4 途径固定碳。本单元进一步追踪碳在细胞间怎样移动,以及研究者如何区分碳浓缩、气孔响应和真正的碳收益。理解这条途径,既需要生化反应图,也需要知道每一种仪器读数能够回答什么问题。
16.1 两类细胞交换的是中间产物
在典型的 NADP-ME 型途径中,叶肉细胞先借助碳酸酐酶提供碳酸氢根,PEPC 将其与三碳的磷酸烯醇式丙酮酸结合,形成四碳的草酰乙酸,再生成苹果酸。苹果酸进入维管束鞘细胞,在其叶绿体中经 NADP-ME 脱羧,释放的 CO₂ 再由 Rubisco 固定,进入卡尔文循环。留下的三碳丙酮酸返回叶肉细胞,由 PPDK 消耗能量再生起始受体。这条返回通路与蔗糖输往茎部的运输通路不同。[18][42]
因此,“四碳”指初始固定产物的碳数,不表示叶片省去了卡尔文循环,也不表示吸入的 CO₂ 直接成为蔗糖。细胞间还要协调三碳中间物、磷酸和还原力的交换;一张教学图可以突出主通路,却不能把各反应画成没有运输和能量约束的单向管道。[42]
16.2 碳浓缩降低光呼吸,也消耗能量
Rubisco 既能进行羧化,也能与氧发生反应。维管束鞘中的碳浓缩提高了它接触 CO₂ 的机会,因而压低光呼吸;这不意味着光呼吸完全消失。再生受体需要额外能量,已经释放的部分 CO₂ 还可能泄漏回叶肉。评价 C4 的优势,应同时考虑浓缩收益、能量支出和叶龄、光照等条件,而不能只数一条反应链有多少个箭头。[42]
机制研究正在从“有哪些酶”走向“哪些调控元件控制这些酶”。2024 年针对割手密 Saccharum spontaneum 的研究,结合酶活与调控实验,支持 NADP-ME 为主要脱羧途径,并验证 ABI5 与相关基因启动子 G-box 的结合。这推进了调控认识,但并未证明改变该调控因子就能使所有商业杂交甘蔗在田间增产。[18]
16.3 环境效应必须连同供水和基因型解释
C4 植物仍要通过气孔获取 CO₂。气孔变化可以同时影响碳输入和蒸腾,盐分、温度与供水又可能共同改变这些过程。只看到气孔较小或叶片较绿,尚不能判断整株碳收益;同一外观可能对应不同的气孔密度、开放状态和生化能力。研究必须记录处理持续时间、叶龄和水分背景,再比较相同尺度上的指标。[34]
2025 年 Co 86032 与突变材料 M4209 的盆栽试验使用 60 日龄植株,进行 15 日热、盐及复合处理;热处理日间 42℃、夜间 30℃,盐处理逐步达到 200 mmol/L NaCl。在供水充足的条件下,单独升温并未普遍压低生长,材料间的复合响应也不同。这个结果提醒我们:试验中的处理温度不是适用于所有蔗区的“最适温度”。[34]
16.4 用互补测量定位限制环节
净光合速率 A 描述测量时单位叶面积与空气的净 CO₂ 交换;叶绿素荧光则提供光系统Ⅱ运行的信息。电子传递增强不必然等量增加净碳同化,某个酶的转录量增加也不等于实际通量增加。解释下降原因,应联合气体交换、光响应或 CO₂ 响应、荧光与组织状态,而不是把一个低读数直接命名为“气孔限制”或“光系统损伤”。[36]
比较不同日期或仪器的数据时,先核对叶温、光强、空气湿度、CO₂ 浓度、测量叶位及是否达到稳态。若处理组在上午测而对照组在午后测,处理效应便与时间效应混在一起。重复测量也要明确独立植株数;同一片叶子连续读取很多次,不能替代来自不同植株的生物学重复。这些记录决定结果是否可比较。
16.5 水分利用效率要标明尺度
叶片内在水分利用效率常写为 A/gₛ,其中 gₛ 应明确为水蒸气气孔导度;A/E 则使用蒸腾速率。二者都不同于全季产量除以耗水量。比值上升也可能伴随 A 下降,所以应同时报告分子和分母。2024 年对美国路易斯安那州 55 个甘蔗基因型的研究发现,叶片碳同位素组成与内在效率相关,却不能分别代表光合速率或气孔导度,也不足以精细排列相近材料。[35]
该试验材料在田间生长,气体交换测量却使用切取后保持供水、带回实验室的蔗茎。引用结果时应保留这一条件。叶片同位素还整合了组织形成过程中的碳信息,不能与一次午间读数画等号。若目标是筛选节水高产材料,仍需把叶片指标接到群体生长、季节耗水与收获结果上。[35]
表 16 测量对象、能回答的问题与解释边界(原创综合)
| 指标或证据 | 直接观察的对象 | 不能单独推出的结论 |
|---|---|---|
| 净光合速率 A | 特定条件下叶面积尺度的净 CO₂ 交换 | 全株全天净积累或最终蔗糖产量 |
| 水蒸气气孔导度 gₛ 与蒸腾 E | 气体扩散与叶片失水的不同侧面 | 小气孔必然节水高产;导度与蒸腾可互换 |
| PSⅡ 有效量子产额、估算电子传递速率 | 光化学运行及其模型估计 | 全部电子都用于净固定碳 |
| 叶片 δ¹³C | 组织碳同位素组成的综合结果 | 一次测量的 A,或不经校准的精细品种排序 |
| 表达量、酶活与基因干预 | 分别涉及转录、催化潜力及扰动效应 | 三者等价,或分子变化已经证明多点田间增产 |
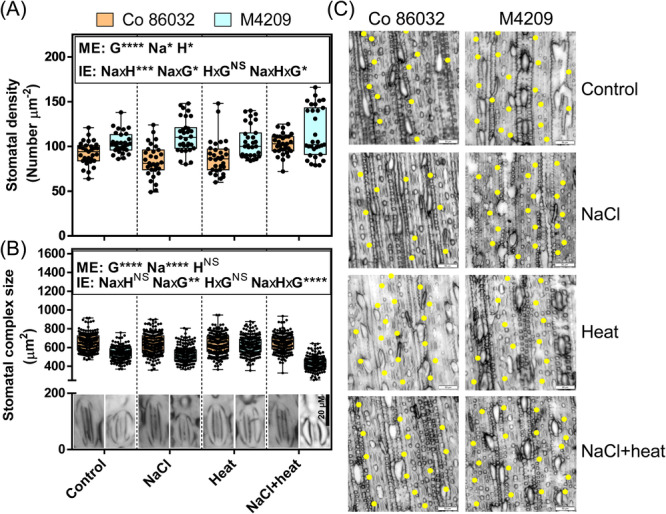
Sugarcane C4 photosynthesis coordinates initial bicarbonate fixation in mesophyll cells with decarboxylation and Rubisco activity in bundle sheath cells. The carbon-concentrating mechanism reduces, but does not abolish, photorespiration and requires additional energy. Recent regulatory and stress experiments reveal mechanisms whose effects remain dependent on genetic material and experimental conditions. Gas exchange, chlorophyll fluorescence and carbon isotope composition provide complementary evidence at different time scales. None alone measures whole-season productivity. Meaningful comparisons require explicit measurement conditions, independent biological replication, and a distinction between intrinsic leaf water-use efficiency and crop-level water productivity. Molecular responses should therefore be connected to growth and field performance before agronomic conclusions are drawn.
返回本篇目录源库关系与蔗糖周转:茎中的糖为何既能积累也能再利用
Source–Sink Relations, Sucrose Turnover, Unloading and Remobilization
蔗茎中的糖量来自一段时间内输入、利用、输出和储藏变化的共同结果。深入理解积糖,需要把叶片的供给、器官的需求、运输路径与细胞内反应放在同一幅收支图中,并区分“糖含量高”与“输送糖的速度快”。
17.1 源和库是一种关系,不是固定器官标签
能够净输出同化碳的组织称为源,净输入并利用或储藏碳的组织称为库。充分展开的叶片通常供给碳,正在形成的新梢、根和节间则需要输入;同一组织的角色会随发育而改变。尤其是种茎萌发时,原先积存在节间的糖可以支持新梢建立。把“叶是源、茎是库”当成永久身份,会遗漏这种再动员过程。[36][39]
库强不仅取决于它有多大,还涉及进入该组织的能力、代谢利用和储藏能力。一个正在快速伸长的节间可能需求旺盛,却暂时没有最高的糖浓度;一个浓度较高的成熟节间也未必在当时吸收最多的新碳。因此,比较节间必须同时交代位置、年龄、体积与生长状态,不能用单次含糖读数代替整个源库过程。[37]
17.2 合成、分解和结构建成都需要碳
蔗糖合成涉及蔗糖磷酸合酶 SPS 与蔗糖磷酸磷酸酶 SPP 的连续反应:先形成蔗糖磷酸,再释放蔗糖。分解端也不只有一条路,转化酶将蔗糖水解成葡萄糖和果糖;蔗糖合酶 SuSy 则催化“蔗糖+UDP ⇌ UDP-葡萄糖+果糖”的可逆反应。名称中的“合成酶”不等于它在任何组织、任何条件下都净合成蔗糖。[36][39]
生成的碳骨架可以进入呼吸和细胞壁建造,也可以再次参与糖的合成。因此,检测到蔗糖分解并不等于发现了应当完全关闭的“损耗通路”。读酶学研究时还要分清不同组织、细胞区室和反应方向:离体测定通常反映规定底物条件下的催化潜力,真实植株中的方向和速度还受底物、产物及其他反应约束。[37][39]
17.3 韧皮部卸载与细胞内储藏不是同一步
碳由叶片进入韧皮部、沿茎长距离运输、离开筛管进入库组织,再到达储藏细胞的相应区室,属于连续但不同的环节。共质体通路经胞间连丝连接细胞质,质外体环节则涉及细胞壁空间与跨膜运输;进入液泡还要跨过液泡膜。途径会受组织和发育状态影响,不能把“到达茎部”直接画成“全部进入液泡并永久存好”。[36][37]
转运蛋白的名称也不能替代功能证据。2017 年研究通过 RNAi 降低 ShSUT1 表达,所得五个转基因株系并没有一致的含糖或纤维表型;作者据此认为它更可能参与细胞间隙蔗糖的回收,而非直接承担叶片韧皮部装载。该结果支持检验具体环节,不能据一个 SUT 基因就宣布找到了所有甘蔗积糖的总开关。[38]
17.4 生长与积糖之间存在可变的资源分配
2024 年对 KQ228 的节间生长、代谢物和蛋白质分析,把积糖变化与细胞壁碳需求、糖分解及液泡运输相关变化联系起来。它帮助解释为什么节间伸长减慢后,更多碳可能进入储藏;但这些过程有重叠,不能改写成“细胞壁建造完全停止才允许积糖”的普遍法则。蛋白质未检出也不等于所有植株中该反应已经消失。[37]
源库之间还存在反馈。N19 的局部遮光试验保留一片成熟叶受光,随后这片叶的光合能力上调,而未成熟茎段的蔗糖降低。这说明供需变化可以改变剩余源叶的表现,却没有证明遮去其他叶片有利于整株增产。局部补偿与整体收益需要分别计算;育种所追求的也应是全季可收获碳的增加。[36]
17.5 再动员要看储量与去向,而非只有浓度
CoS 97264 的萌发研究比较黑暗与明暗条件下的新梢建立,观察到种茎节间蔗糖下降、己糖及相关酶活变化,新梢中糖增加。这支持种茎储藏碳参与建立新植株的解释;研究材料与处理限定了结论,不能把该时间过程当作各地出苗日历,也不能据此断言所有运出的碳最终都留在新叶。[39]
数量上,某区室的糖储量要由浓度和该区室的质量或体积共同计算。含水量降低可能提高鲜重基浓度,却未增加糖的绝对量;组织膨大则可能稀释浓度。因此,追踪再动员宜同时记录干物质、糖储量、取样区室和时间,并在研究条件允许时使用示踪与收支分析。仅有两次浓度变化,仍不能分辨运输、呼吸和新合成各占多少。
表 17 沿碳流逐环节提问(原创综合)
| 环节 | 应区分的过程 | 可避免的误读 |
|---|---|---|
| 源叶供给 | 叶面积、净同化与碳输出 | 一片叶 A 上升就是整株产量上升 |
| 长距离运输与卸载 | 进入韧皮部、运输、离开筛管及库内再分配 | 任何 SUT 的表达量都能代表运输总量 |
| 糖代谢 | SPS/SPP、转化酶与 SuSy 的反应及所在区室 | “合成酶”只能向合成方向作用 |
| 细胞内储藏 | 进入细胞与跨液泡膜运输、储藏与再利用 | 流入茎部的糖都永久储藏 |
| 节间或种茎的收支 | 浓度、组织质量、糖储量与时间通量 | 浓度下降必然等于全部运出;鲜重浓度上升必然增糖 |
Sucrose accumulation is the net outcome of supply, transport, metabolic use, storage and remobilization. Source and sink roles change during development: a storage internode can supply an emerging shoot. Sucrose synthesis and cleavage occur alongside respiration and cell-wall construction, and enzyme names do not determine the direction of metabolic flux. Phloem unloading must also be distinguished from transport across storage-cell membranes. Experiments involving shading, transporter suppression and developing internodes demonstrate interacting processes rather than a universal control switch. Concentration measurements should be interpreted with tissue mass, water content and sampling time. Establishing carbon fluxes requires stronger evidence than changes in a single metabolite pool.
返回本篇目录芽的静止、萌发与分蘖:把激素、碳资源和证据层次联系起来
Bud Quiescence, Sprouting and Tillering: Hormonal Networks, Resources and Evidence
同一节位的芽可能保持静止、开始膨大、形成新梢,也可能在后续竞争中停止生长。研究芽的命运,需要区分形态阶段、限制条件和最终存活结果;“某基因上调”“更早萌芽”与“收获时有效茎更多”是不同层次的问题。
18.1 先分清没有生长的原因
田间看见芽未伸长,可以先记录为“静止芽”,不必立即诊断为严格意义上的内生休眠。芽可能受到母茎整体调节,也可能缺少适合的水、温度或资源,或已经受伤失活。区分这些解释需要后续证据:改变环境或解除相关约束后能否恢复,芽组织是否完整,以及同批材料的反应是否一致。单张照片不能回答所有问题。
2026 年一项 XTT22 研究把未展开芽到新叶出现划为五个形态阶段,并将第一阶段称为休眠期。这是一套有用的取样定义,但其研究设计并非专门检验内生休眠。引用“休眠相关基因”时,应保留操作性定义,不能由阶段命名反推出已经定位了唯一的休眠机制。[41]
18.2 从种茎资源走向能够独立建立的新梢
萌发初期,新梢尚不能依靠充分展开的叶片提供全部碳。CoS 97264 的种茎研究在明暗与黑暗条件下,追踪了节间和新梢的糖及代谢酶变化,支持蔗糖为建立过程提供重要底物。这个阶段应同时考虑储藏碳的利用和新组织的消耗,而不能只问芽里“还有多少糖”;糖高也可能意味着利用较慢,未必代表生长势更强。[39]
形态上出现新叶,也不自动证明新梢已经实现净自养。前述 2026 年试验在 28℃、相对湿度 70% 的黑暗条件下培养单芽茎段,因此光合作用相关基因的富集只能提示发育程序或潜在能力变化,不能作为实际光合供碳已经建立的证据。要跨过这一步,需要有光条件下的气体交换或碳收支测量。[41]
18.3 激素变化是网络线索,不是通用施用处方
芽生长涉及生长素、细胞分裂素、赤霉素、脱落酸以及独脚金内酯等调节过程。不同激素的作用依赖组织、阶段和相互关系,不能用“某一种永远促芽、另一种永远抑芽”的表格代替网络。整体母茎与离体单芽茎段也处于不同的运输和资源条件下;后者的结果不宜直接照搬到留茬后的整个蔗丛。[40][41]
XTT22 的阶段研究联合激素指标、转录组和加权共表达网络,得到与萌发进程相关的候选转录因子。这类证据能缩小后续验证范围;RT-qPCR 与测序趋势一致,验证的是表达结果,并非已经证明候选基因控制芽萌发。若激素与芽长同时改变,也仍需区分原因、反馈和共同受发育阶段影响三种解释。[41]
18.4 功能干预揭示分蘖与抗逆之间的权衡
较强的机制证据来自有对照的基因干预。2025 年在线发表、编入 2026 年卷期的 ScD27.2 研究,在 XTT22 中进行 RNAi 抑制及过表达:抑制株系分蘖较多,过表达株系较少;部分抑制材料在干旱处理中表现较弱。结合独脚金内酯相关测定,这比仅凭表达相关性更支持该基因参与调控。[40]
同一研究也报告了盆桶试验的产量性状,但这不是多蔗区、多季节的农艺验证。增加分蘖可能同时改变株高、资源竞争和胁迫响应,最后留下的有效茎与最初长出的分蘖不是同一数目。评价改良方向,应把早期分蘖、存活、茎重与含糖表现一起追踪,而不是把“分蘖更多”直接作为成功终点。[40]
18.5 怎样检验资源作用与信号作用
糖既是生长底物,也可能参与状态信息传递;但观察到糖量与萌芽同时变化,还不能把两种作用分开。尤其在萌发体系中,外加糖还改变培养环境的渗透条件。若要检验信号假说,实验需要考虑等渗对照、碳利用情况、时间先后和相应遗传干预,并检查变化是否先于可见生长。这里提出的是验证逻辑,不是把这些机制宣布为甘蔗芽中已全部证实的事实。
同样的逻辑适用于田间分蘖:先定义目标是萌发速度、成苗率,还是收获期单位面积有效茎数;然后记录品种、种茎节位、贮藏状态、供水与光环境。不同批次和独立地块的重复,可帮助分开材料差异与处理作用。研究报告若只给最后一张长势照片,便难以判断差异来自芽的启动、随后存活,还是后期资源分配。
表 18 从芽的观察走向机制和田间价值(原创综合)
| 证据层次 | 适合回答的问题 | 仍需补充的证据 |
|---|---|---|
| 形态序列与活力观察 | 何时膨大、出梢,哪些芽最终存活 | 未生长是环境限制、母体调节还是损伤 |
| 激素、代谢物与转录组 | 哪些指标随阶段共同改变 | 因果方向、组织定位及独立重复 |
| RT-qPCR 复核 | 候选转录变化是否得到另一检测方法支持 | 基因功能及其对生理过程的影响 |
| 抑制、过表达与补偿实验 | 改变某环节能否引起可重复表型 | 背景效应、间接作用和不同条件下的代价 |
| 多季多点群体验证 | 分蘖变化能否转化为稳定有效茎和糖产量 | 当地管理适用性、环境互作与持续表现 |
Bud sprouting, shoot establishment and productive tillering should be evaluated as connected but distinct stages. A non-growing bud is not automatically evidence of intrinsic dormancy. Stored sett carbon supports early development, while visible leaves or photosynthesis-related transcripts do not establish functional carbon autonomy. Hormone profiling and co-expression analysis identify candidates, but causal claims require intervention. Recent ScD27.2 experiments provide functional evidence linking tillering with stress-related trade-offs in a particular genetic background. Their pot-scale outcomes do not establish stable field gains. Evaluation should track initiation, survival and harvestable stalks, while distinguishing nutritional carbon effects from proposed sugar signals through appropriately controlled experiments.
返回本篇目录开花诱导、光周期与花序发育
Floral induction, photoperiod and inflorescence development
甘蔗从长叶长茎转向形成花序,是一串能够分别观测的发育事件。研究中应把诱导条件、茎尖的结构变化、抽穗和开花结实分开记录,才不会把同一张抽穗照片解释成整条生殖过程已经成功。
19.1 先分清三个时间点
开花诱导指植株接受能够促使生殖转变的条件;花芽分化需要茎尖组织学证据;抽穗则是花序从叶鞘中伸出,属于更晚、肉眼可见的事件。Manechini 等把同株的叶片表达资料与茎尖切片配对,正是为了避免用叶片信号代替花序结构本身。[43]
因此,田间出现穗状顶部,只能先记为抽穗植株。还需另查小花开放、花药散粉和后续结实,才能描述生殖进程。反过来,未见抽穗也不足以判定植株从未受到诱导;研究记录应保留“未观测到”与“经切片证实未转变”的区别。这是对不同观测尺度的证据要求。[43][13]
19.2 日长方案必须连同材料和制度保存
巴西 IAC 的一项试验以 IACSP96-7569 为材料,植株移入盆钵培养七个月后接受两种光周期:非诱导组保持每天 13 小时 30 分钟;诱导组从 12 小时 50 分钟开始,每天缩短 45 秒。研究在诱导组第七周、处理后 45 天的茎尖切片中看到向花分生组织转变的开始。[43]
这些数字是该品种、植龄、盆栽和设施条件下的处理方案及观察结果,并不是“全球甘蔗达到某一日长必然开花”的阈值。本文不把它扩展为任意温度条件下的保证。比较两项试验时,应同时核对初始日长、递减速率、开始处理时的植株状态和观察终点;只比较日照小时数会丢失关键条件。
19.3 从茎尖到花序,建立连续的观察链
上述试验按周对分期取样株采集茎尖,并在较晚的第十三周继续比较发育状态,说明确认转变需要时间序列。制作观察档案时,先给植株编号,再记录茎尖是否仍保持营养生长形态、是否出现花序原基、是否进入可见抽穗;分开保存日期和切片编号,不能仅凭前后两张外观图补写中间阶段。[43]
成熟圆锥花序包含多级分枝及成对的小穗,小穗才是检查花器官的合适单位。花序全景、单个分枝、小穗和花药的照片解决不同问题,应分别配比例参照。只有全景照片时,可以确认花序外观,却不能估计花粉活力或正常颖果比例。[13]
19.4 营养条件不能用一句经验口号概括
Hale 等在路易斯安那连续三年研究 HoCP96-540,比较人工光周期下的四种培养介质和三种施肥安排。该试验中培养介质对所测开花比例和天数没有显著影响,而持续施肥处理的抽穗表现优于预先停止施肥的对照。这一结果直接提醒我们:不能把“停止施肥有利开花”写成跨品种规则。[16]
但这也不能反向变成无限增加肥料的建议。研究比较的是规定盆容、配方、供肥时间和设施制度下的处理,所得指标主要是抽穗比例与时间。若目标改为花粉可育性、杂交成功率或田间糖产量,就必须另测相应结果,不能借用抽穗指标宣布这些目标已经改善。
19.5 基因表达是寻找机制的线索
光周期研究分别取成熟的 +1 叶、未展开心叶和茎尖,并固定日内取样时点。这样可以减少叶龄、组织类别和昼夜变化造成的混淆。成熟叶表达发生差异,表示该组织在该时间作出了响应;它不能单独证明某个基因决定茎尖转变,更不能证明改变该基因一定能控制田间抽穗。[43]
GAKI 的进阶记录宜并列三层证据:处理是否改变开花表型;切片是否确认结构转变;候选基因是否经过独立功能试验。表达量分析与重复检测可以增强关联的可信度,但缺少功能验证时,条目应写“参与候选网络”或“与诱导相关”。由此形成的研究问题也更具体:候选信号改变发生在茎尖转变之前,还是之后?
比较来自不同地区的照片时,还应检查日期究竟指拍摄日、样品固定日还是论文发表日。只有发表年份,便不能补写植株当年的诱导季节。照片若缺少茎尖切片或连续观察,图注应停留在能看清的器官与阶段。把这些缺项显式保留,后来的观察者才知道应该补拍哪一部分,而不是沿用未经验证的时间顺序。
原创综合表:开花研究的事件、证据与推断边界
| 阶段 | 直接记录 | 可以支持 | 尚不能支持 |
|---|---|---|---|
| 诱导处理 | 品种、植龄、完整日长序列、设施环境 | 比较指定处理之间的响应 [43] | 一个通用于全部材料的临界日长 |
| 茎尖转变 | 连续时点的茎尖切片及原基形态 | 确认被取样茎尖的发育状态 [43] | 由叶片表达替代组织学确认 |
| 抽穗 | 逐株抽穗日期、抽穗株数和总株数 | 比较抽穗比例与时间 [16] | 花粉可育、结实率或糖产量提高 |
| 花器官功能 | 散粉、小花开放、花粉测定 | 描述检测条件下的雄性功能 [44] | 仅凭开花照片确认受精成功 |
| 分子机制 | 相同组织及时点的表达比较、功能验证 | 区分表达关联与因果试验 [43] | 把候选基因直接写成已验证的田间控制开关 |
Sugarcane flowering should be documented as a sequence of induction, meristem transition, inflorescence development, emergence and reproductive function. A controlled study of IACSP96-7569 illustrates why photoperiod schedules must retain their genotype, plant age and facility context. Emergence measurements cannot establish pollen fertility or seed production. Experiments with HoCP96-540 also challenge universal fertilizer-withdrawal advice. For molecular interpretation, tissue identity, developmental stage and sampling time matter. Expression differences identify candidate responses, while anatomical observations establish developmental state. Functional experiments are still required before a candidate gene can be described as a reliable means of controlling field flowering.
返回本篇目录花粉、受精、颖果与萌发
Pollen, fertilization, caryopses and germination
从一粒花粉到一株正常实生苗,中间有多个可能限制成功的环节。把花粉染色、结实、颖果萌发和幼苗成活混成一个“发芽率”,会使杂交资料难以比较,也会掩盖真正发生失败的阶段。
20.1 花粉染色测到的是什么
Snyman 等在南非不同地点采集刚散出的甘蔗花粉,现场用碘化钾—碘液和 TTC 两类染色法评价。前者主要依据淀粉显色,后者依据代谢还原形成的红色。它们检测的生理指标不同;论文在其样本中得到相近的总体结果,并不表示所有材料、所有保存条件下两种方法都能互换。[44]
染色阳性应按采用的方法报告,不能直接改称完成受精的百分比。花粉在培养条件下长出花粉管、在柱头上发挥功能,以及最后产生正常后代,属于逐步更接近繁殖成功的不同指标。采粉至检测的间隔、环境、计数方法和重复数都应与结果一起保存。[44]
20.2 授粉、受精和颖果形成要逐项确认
花粉到达柱头是授粉;产生新的胚需要后续受精和胚的发育。甘蔗的成熟果实属于颖果,是含一粒种子、成熟时不开裂的干果。果皮与种子部分结合紧密,因此日常所说的“甘蔗种子”常指整粒颖果;作为植物学条目,仍应区分果实与其中的种子。[47]
开花多不等于饱满颖果多,收集到大量绒毛状材料也不等于获得了等量有生活力的种子。正反交试验分别检查小穗是否含颖果、正常幼苗比例和单位重量所得苗数,正是把形成果实与形成可用后代分开。研究条目应保留这些终点,避免只用“杂交成功”概括全部过程。[15]
20.3 fuzz 不是一粒植物学意义上的种子
甘蔗育种中收集、贮藏和播撒的 fuzz,通常包括颖果、颖片、基部毛以及其他花器官残余;同一份材料中也可能有不含正常颖果的小穗。绒毛主要属于花序或小穗的附属结构,不应在图注中一概标成“种子表面的毛”。[13]
这决定了分母必须写清:每百个小穗的结实数、每百粒选出颖果的萌发数、每克 fuzz 的正常苗数,回答的是三个问题。若仅写百分数,不说明取样单位与是否挑选饱满粒,批次比较就可能产生假差异。称量绒毛材料也不能直接换算种子粒数;清选后的结果须与原始材料的纯度一起解释。[15][13]
20.4 母本与父本角色可以产生不同结果
Diniz 等以 RB92579 与六个亲本进行十二个正反交组合。在这批材料和试验条件下,RB92579 作为花粉供体时,结实及正常幼苗产出总体较好。该结论适用于所测亲本配组,不应扩展成这个品种在所有年份、地点与杂交对象中必定更适合作父本。[15]
评价一对亲本时,可将 A×B 与 B×A 分列,逐项记录花期重叠、花粉检测、含颖果小穗比例及正常苗数。这样才有机会区分供粉不足、母方结实受限和萌发后质量较差。仅观察到正反交差异,还不足以把原因直接归为细胞质遗传或某一单独基因,需要进一步的机制试验。
20.5 从萌发事件走向正常幼苗
Pierre 等用八个双亲杂交组合的贮藏 fuzz 研究温度和光暗响应,其中四个组合另作水势试验;实测温度范围为 18–42℃。[45]模型估计的基温随组合而异,不能把外推所得基温写成已经在该温度观察到萌发。不同组合对光暗条件的响应也不完全一致,因此不宜给全部甘蔗写一个固定的“最佳萌发温度”或必需光照规则。[45]
该研究未将颖果从 fuzz 中分离,而是按 fuzz 质量取样;温度试验以同一组合在 30℃下的平均最终萌发数为 100%。所以论文中的相对百分数,不等于按全部供试颖果计数的绝对萌发率。[45]
这些材料经历过低温贮藏,所得结果不是新鲜田间散落颖果的直接替代。报告时还须区分胚根出现、正常幼苗形成与移栽后存活:较快露根并不自动代表苗体完整或田间建立良好。记录连续照片、异常苗类型和未萌发单位,比单个最终百分数更能指出下一步应检查种子质量、试验环境还是后续幼苗生长。
例如,同样记录到十株正常苗,若一组投入的是一百个随机小穗,另一组投入的是一百粒已经挑出的颖果,两个结果就不能直接用于比较亲本繁殖力。这个例子仅说明分母选择的逻辑,不是本稿报告的实测数据。上传数据库时应同时保留原始计数和计算公式,使读者可以重新计算,而不只保留一个四舍五入后的百分数。
原创综合表:繁殖评价中的对象与分母
| 对象或指标 | 统计单位 | 回答的问题 | 解释边界 |
|---|---|---|---|
| 花粉染色阳性 | 阳性花粉粒/已观察花粉粒 | 指定染色方法下的生理反应 [44] | 不能直接等同于受精率 |
| 含颖果小穗 | 含颖果小穗/检查小穗 | 收集材料中果实形成状况 [15] | 不能保证颖果均有生活力 |
| fuzz 样本的相对萌发响应 | 同量 fuzz 的处理萌发数/该组合对照平均萌发数 | 比较温度试验中的相对响应;该研究以 30℃为对照 [45] | 不同于逐粒计数的绝对萌发率;对照需随试验说明 |
| 单位重量苗数 | 正常幼苗/克 fuzz | 原始杂交材料能提供多少正常苗 [15] | 受纯度与种子质量共同影响 |
| 幼苗建立 | 存活植株/移栽幼苗 | 后续培养阶段的存活结果 | 是建议另设的观察终点,不能由露根比例推算 |
Pollen staining, fertilization, caryopsis formation, germination and seedling establishment are separate endpoints. Iodine and TTC assays assess different properties and should not be reported as fertilization rates. Sugarcane produces a caryopsis, while breeding fuzz includes the fruit and associated floral material. Percentages are interpretable only when their denominators are explicit. Reciprocal crosses involving RB92579 demonstrate that parental direction matters within particular crosses, without establishing a universal male-parent rule. Germination experiments with eight stored seed families further show why temperature responses, modelled base temperatures and light effects must retain their experimental context. Normal seedlings and subsequent survival require additional observation.
返回本篇目录宿根再生的器官更新、根芽关系和多周期变化
Organ renewal, root–bud relationships and changes across ratoon cycles
宿根蔗利用收割后留在土中的蔗兜继续生长。理解这一过程,需要同时看地下茎的芽、残留根与新根,并把单个器官的年龄、蔗兜经历的收割次数和田块环境的变化分开。
21.1 新茎来自芽,不能把根和芽混为一谈
蔗兜保留地下或近地面的茎部结构与节上芽,新地上茎由这些芽形成。新梢基部的节又可形成芽与根原基,使蔗丛继续更新。名称中的“宿根”强调留蔸再生的生产方式,不意味着新蔗茎直接从任意一条老根上长出。[13]
因此,挖取蔗兜观察时,宜先找出旧茎基部、节、芽和新梢的连接,再辨认不同来源的根。照片若只显示缠在一起的根束,不能证明芽的着生位置。记录时把“芽已存在”“芽已萌动”“新梢已出土”“形成有效茎”列成不同状态,避免用一个出苗数概括蔗兜全部再生潜力。
21.2 收割后的根系是新旧器官共同组成的
巴西东北部一项新植蔗与第一宿根的研究同时使用土芯和微根管观察,记录到收割后部分根量消退,也观察到宿根阶段仍有活根。研究中的两次收割还伴随燃烧处理与土壤水分条件的差异,不能把根死亡差别全部归因于“又老了一年”。[14]
器官更新宜按根的来源与状态描述:残留活根、旧根上的新分枝,以及新梢基部形成的根,不宜统称为同一批“老根”。一张根量较大的照片也不足以证明吸收功能更强,因为可见总量可能包含死根,且根长、根径、分布位置和功能并不是同一指标。连续追踪同一观察面比比较两次任意挖出的根团更有解释力。[14][13]
21.3 根的分布会随品种与作期改变
Zhao 等在云南开远避雨设施内,对 ROC22、YZ04-241、YZ05-194、YZ05-51 四个基因型进行新植、第一宿根和第二宿根的微根管观察。研究将根长、根长密度、增长速率与土层分布分别分析,发现作期和基因型都会影响这些指标;它没有给出一条能够代表所有甘蔗的固定根深曲线。[7]
该试验观测深度到 1.08 米,设置两个区组,并采用规定的灌溉与施肥制度。可见根在某土层占比较高,不表示更深处没有根;取样范围内的分布比例也不能直接当作整株最大扎根深度。应用其结果时,要保存“在哪里、观察多深、何时扫描、怎样计算”这四项背景。[7]
21.4 多周期下降是需要解释的现象
判断宿根衰退,应先说明下降的是单位面积茎数、单茎重量、蔗产量,还是糖产量。相同总产量下降可以来自不同组成部分,补苗、改善根区环境或检查植株健康所针对的问题也不同。蔗兜缺失、芽受损、根区水分状况及管理变化应作为待检因素分别记录,不能仅凭作期编号推定病因。
这里尤其要区分同步出现与因果作用:同一田块连续收割时,作期、日历年份和累计作业往往一起变化。只有在记录天气、土壤、健康状况、采收损伤和管理背景后,才可能提出有依据的解释;进一步确定某一因素的作用还需要对照或专门试验。根动态研究中收割条件不同,正说明这种混淆会影响解释。[14]
21.5 新转录组结果提供候选机制,不给固定寿命
2026 年发表的一项开远田间研究连续比较三个品种的新植蔗至第四宿根,并对每年九月采集的 0–20 厘米土层细吸收根作转录组分析。[46]在这一试验中,第二至第三宿根之间出现显著产量下降,多个表达模块同时发生变化。这是该地点、三份材料和五年试验序列的结果,不能据此规定其他产区都必须在第三宿根更新。[46]
论文明确说明,候选基因缺乏直接遗传功能验证,转录资料也不能代替蛋白和代谢物测量。GAKI 因而将其归入“衰退相关的候选网络”。有用的下一步是把芽的存活、根的更新和有效茎形成与同一试验中的产量连接起来,再检验候选机制;把所有下降简称为“基因老化”,反而会丢失可验证的器官和环境证据。[46]
连续作期档案可为每个蔗兜设一条永久编号,再为每一季的新茎和根样设置子编号。同一蔗兜经历多次收割,不代表当季观察到的每条根具有同样年龄。把蔗兜延续时间、某根段首次出现时间和当前作期分成三列,能够避免把群体的多年变化误写成单个器官一直变老,也便于把新增器官与保留下来的器官分别统计。
原创综合表:把宿根再生拆成可以追踪的器官与结果
| 层级 | 建议记录 | 主要解决的问题 | 解释边界 |
|---|---|---|---|
| 蔗兜与茎芽 | 原位置、存活芽、新梢及缺株位置 | 再生起点是否保留 [13] | 出土苗数不等于全部潜在芽数 |
| 根的更新 | 旧根存活、新出现根段、死亡根段 | 新旧根怎样更替 [14] | 总根量不能代替活根功能 |
| 土层分布 | 深度、取样范围、日期、根长指标 | 不同材料与作期如何占据根区 [7] | 有限观察深度不是整株最大根深 |
| 作物群体 | 有效茎数、单茎重、蔗产量与糖产量 | 下降主要发生在哪个产量组成环节 | 这些是建议联合记录的指标,不能由根照片推算 |
| 环境与作业 | 年份、水分背景、采收方式、损伤及健康记录 | 识别与作期同步变化的因素 [14] | 相关因素需进一步对照才能确认因果 |
| 分子响应 | 同组织同阶段的表达、独立功能验证 | 提出并检验候选机制 [46] | 表达模块不是已经证实的衰退原因 |
Ratooning depends on renewal within a surviving stool, including stem buds, residual roots and newly formed root cohorts. New shoots should be traced to their stem-node origin rather than assumed to arise from old roots. Root mass, living root length, growth and depth distribution describe different properties. Studies comparing crop cycles show that genotype, observation depth and harvest conditions constrain interpretation. Decline across successive ratoons must also be separated from calendar-year and management effects. A 2026 root-transcriptome study identifies a transition within one field experiment, but its candidate networks are associative and do not establish a universal ratoon lifespan or a single genetic cause.
返回本篇目录把植物学变成可比较的测量
From botanical description to comparable measurements
同一株甘蔗的不同部位并非相同材料。先把取样位置、状态和受力方式说清,才能把器官知识用于栽培与机械研究。
22.1 定义样本:一株、一节与一次读数
观察单株时,给蔗茎一个固定编号,记录品种、植株年龄、新植或宿根轮次、叶位和节位,再描述取样位置。节位从基部向上还是从梢端向下计数必须写明;不同论文中的“第3节间”只有在编号起点相同后才能比较。对同一节间重复读数,可估计测量的重复性;比较不同植株,才能观察生物学变异。
在一根茎上测得的多个点并不自动等于多株独立重复。若比较同一蔗茎的基部与中部,可保留配对关系;若比较两个品种,则需要同时考虑不同植株以及环境重复。以下记录与试验框架是本章据植物结构提出的编辑性建议,实际试验仍应按研究问题确定样本量和统计方法。
22.2 把不同力学指标分别测量
茎外层穿刺、整段弯曲、局部压缩和刀片切断具有不同的接触方式。穿刺试验侧重局部抵抗探针的响应,弯曲试验同时受到材料性质、截面形状和支撑距离影响,切割试验还引入刀具几何和运动条件。因此,同一品种可以在某项指标上较高,在另一项指标上表现不同。
Shen等在广西大学扶绥试验材料上分别测定茎外层穿刺阻力和折断力,并研究近红外光谱标定。其方法明确记录取样节间、探针和生物学重复,说明“测哪里、怎样加载”是表型定义的一部分。光谱预测建立在实测标定上,使用新材料或新仪器时还要检验适用性。[48]
报告时区分力、应力与刚度:峰值力使用N,按接触或切割面积归一化后得到的量需要同时交代面积定义;弯曲结果还应保留跨距和加载位置。把仪器输出中的一个最大值直接称为“甘蔗硬度”,会丢失它对应的结构和试验条件。
22.3 含水状态、方向与节位共同进入试验
刚砍下的蔗茎会随保存过程改变状态,因而应记录采样至测试的间隔、保存方式以及实际含水率。湿基和干基含水率使用不同分母,比较资料前必须统一口径。Taghinezhad等用直线刀片与材料试验装置研究含水率和切割截面积,分别分析峰值力、切割能量、极限应力及比能量;这些指标不能互相代替。[49]
同时标明节或节间、带叶鞘或去叶鞘、完整或已有伤口,以及轴向或横向受力。需要研究叶鞘对夹持和剥叶的作用时,应采用相应样本,而不能从已去叶的茎段直接推断整株表现。外观直径和颜色适合描述形态,不能单独替代组织、含水或力学测定。
22.4 读懂新模型的证据边界
2026年发表的一项研究对成熟桂糖21的基部和中部节间进行了轴向压缩、径向压缩与三点弯曲比较,建立宏观等效有限元模型。结果支持在该材料与加载条件下区分方向和取样部位。作者同时说明,含水率和解剖特征未直接定量,模型比较限于准静态、破坏前的弯曲响应。[50]
这类工作可帮助提出夹持与输送试验中的变量,但不能据其应力云图直接认定实际组织已经破裂。针对基切过程的另一项研究则建立各向异性模型并与切割试验比较;其切割过程和参数条件,应与前述弯曲研究分别阅读。[51]
22.5 从倒伏植株建立作业对象清单
面对倒伏甘蔗,先描述发生了什么:茎基部是否随根土体转动,茎是否连续弯曲,是否存在明确折断面,倒伏方向是否与蔗行一致,叶片和不同蔗茎是否交缠。保留基部、弯折位置和整株三个尺度的照片,能避免只凭一个倾角概括全部倒伏。
接着把植物学对象对应到作业接口:扶蔗研究需要知道可接触部位及交缠状态;夹送研究需要知道直径、节部突起、叶鞘和已有损伤;基切研究需要知道基部位置、保留芽及土壤接触;剥叶研究需要知道叶鞘包裹与叶龄。表中的记录是待测项目,不是已经验证的机器能力。
试验结束后,除作业速度与能耗,还应记录漏割、折茎、拔蔸、保留芽损伤及切口形态,并在后续观察中连接到萌芽和再生。这样才能把一次机械接触与植物后续反应联系起来,形成能够积累的证据,而不是把一次顺利喂入当作全部工况的结论。
植物结构与机械试验的对应记录
| 对象或接口 | 需要保留的植物学信息 | 建议单独记录的结果 |
|---|---|---|
| 扶蔗 | 根土体、弯折位置、倒向、交缠部位 | 接触点、扶起过程、再折断或拔起 |
| 夹持与输送 | 节位、直径、叶鞘、含水与既有伤口 | 滑移、压伤、夹送中断、整茎姿态 |
| 基部切割 | 切口相对节位、保留芽、基部及土壤状态 | 漏割、裂口、拔蔸、芽损伤 |
| 剥叶 | 叶龄、叶鞘包裹、干湿与附着状态 | 叶鞘去除情况、表面伤口、残留 |
| 分段取样 | 编号方向、节与节间、同株配对关系 | 峰值力、能量、面积或跨距定义 |
| 后续再生 | 原蔗蔸身份、活芽和原有根状态 | 保留芽萌动、新梢出土、成茎与缺株的实际观测 |
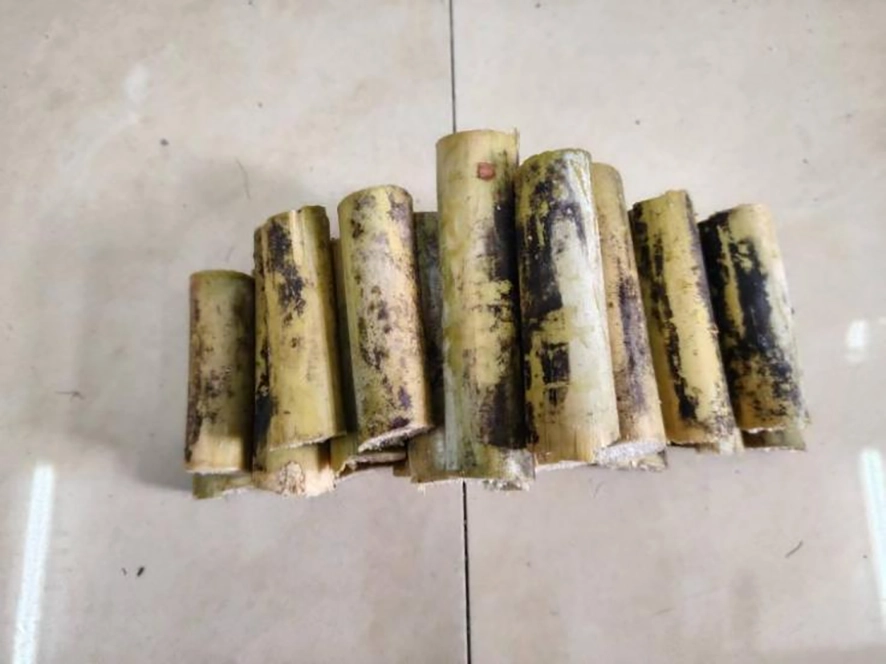
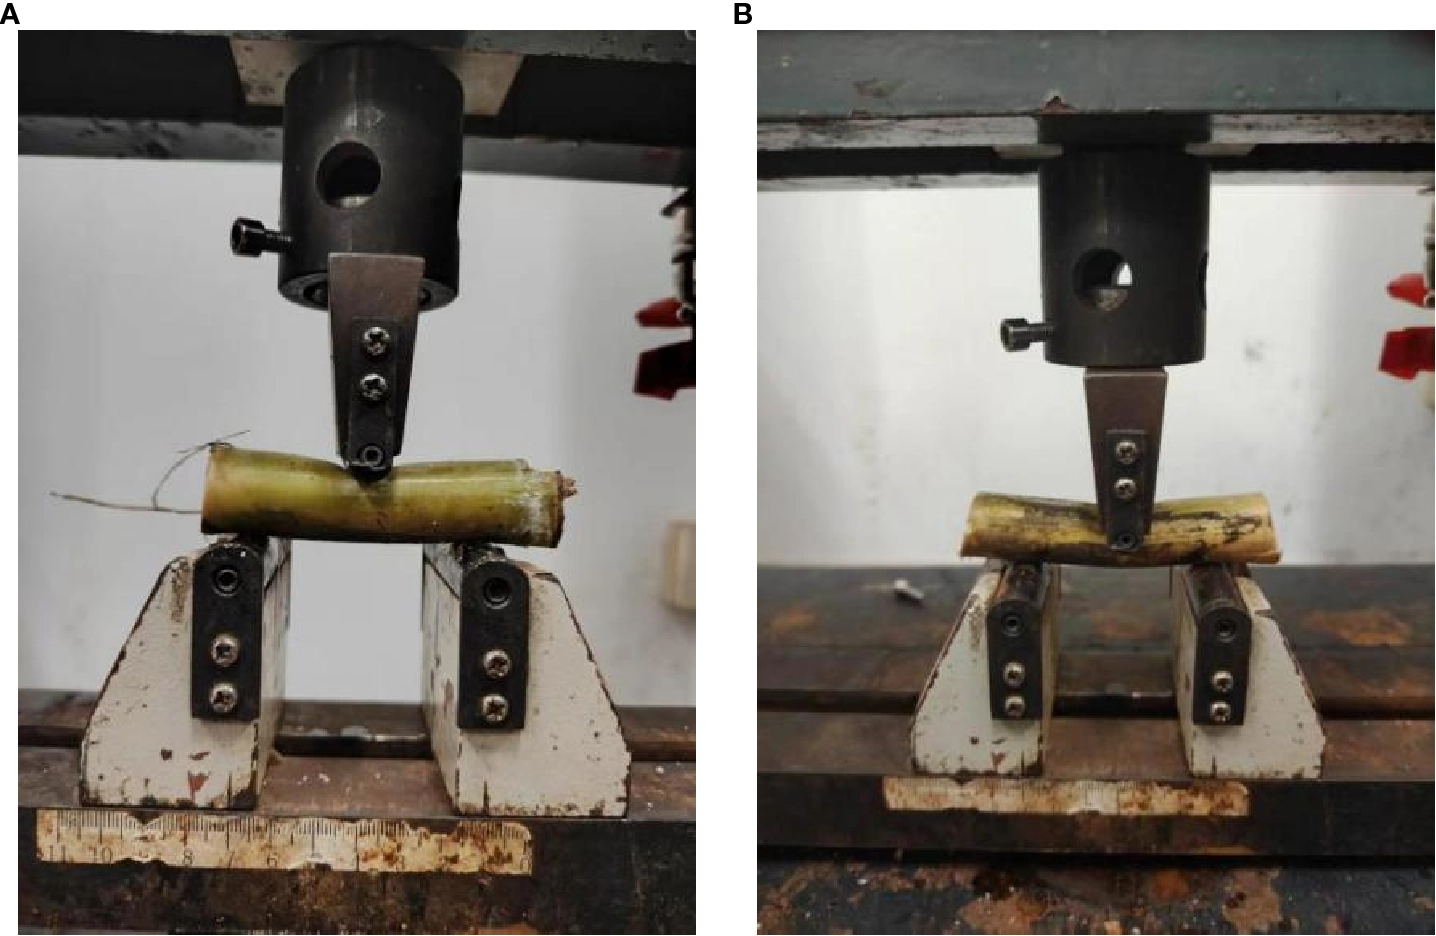
Comparable measurements begin with a defined biological sample. Record genotype, crop cycle, organ position, node numbering, water status and time since harvest. Repeated readings within one stalk should be distinguished from independent plants. Rind penetration, compression, bending and cutting measure different responses and require different loading descriptions. Recent sugarcane models support attention to direction and stalk position, but model agreement remains conditional on the tested material and loading regime. The proposed machinery interface table translates botanical observations into questions for lifting, feeding, cutting and leaf removal. It is an observation framework, not evidence that a harvester has passed a field trial.
返回本篇目录中英术语对照
本章51组术语
| 中文 | English | 含义 |
|---|---|---|
| 甘蔗属 | Saccharum | 禾本科中的属名 |
| 栽培品种 | cultivar | 特定选育材料;保留原品种代号 |
| 无性系 | clone | 由营养繁殖延续的材料群体 |
| 多倍体 | polyploid | 具有超过两套染色体组的状态 |
| 非整倍体 | aneuploid | 染色体构成不是整套的简单倍数 |
| 蔗茎/秆 | culm / stalk | 地上主要支撑与储藏轴 |
| 节 | node | 叶着生及芽、根原基附近区域 |
| 节间 | internode | 相邻节之间的茎段 |
| 腋芽 | axillary bud | 叶腋处可形成新芽茎的芽 |
| 根原基 | root primordium | 发育为根的早期结构 |
| 种茎根 | sett root | 从种茎节位发生的根 |
| 茎生根/植株根 | shoot root | 从新芽茎下部节位发生的根 |
| 叶片 | leaf blade | 向外伸展的叶部 |
| 叶鞘 | leaf sheath | 围抱茎秆的叶基部 |
| 叶舌 | ligule | 叶鞘与叶片交界内侧的膜状附属物 |
| 叶耳 | auricle | 叶鞘上缘侧部的附属结构 |
| 叶枕/肥厚带 | dewlap | 叶片与叶鞘交界可辨认区域 |
| 最上位可见叶枕叶 | TVD leaf | 规定观察叶龄的一种定位方式 |
| 维管束 | vascular bundle | 含木质部、韧皮部等的组织束 |
| 维管束鞘 | bundle sheath | 围绕维管束的细胞;不等于叶鞘 |
| 薄壁组织 | parenchyma | 包含重要储藏细胞的组织 |
| 韧皮部 | phloem | 参与同化物运输 |
| 木质部 | xylem | 参与水及矿质元素输导 |
| 分蘖 | tiller / tillering | 基部芽形成的新芽茎或其发生过程 |
| 蔗丛 | stool | 相互联系的茎基部及芽茎群 |
| 圆锥花序 | panicle | 分枝的花序结构 |
| 颖果 | caryopsis | 禾本科典型的单种子、不开裂干果,果皮与种子部分紧密结合。甘蔗育种中常称为种子,但植物学记录仍应区分整粒果实与其中的种子。 [47] |
| 絮状播种材料 | fuzz | 甘蔗育种所收集或播撒的带毛繁殖材料,含颖果、颖片、基部毛和其他花器官残余;不能按一团 fuzz 等于一粒种子计数。 [13, 15] |
| 种茎 | sett / seed cane | 用于营养繁殖的带芽茎段 |
| 宿根蔗 | ratoon cane | 收获后由保留蔗蔸再生的作物 |
| 源与库 | source and sink | 组织间同化碳净输出、输入、利用与储藏的关系;同一器官可随发育改变角色,例如种茎储藏碳供给正在建立的新梢。 [36, 39] |
| 蔗糖卸载 | sucrose unloading | 同化物离开运输韧皮部并进入库组织的过程;要与长距离运输、库组织内再分配以及跨液泡膜进入储藏区室分开。 [36, 37, 38] |
| 溶生通气组织 | Lysigenous aerenchyma | 通过部分细胞死亡、分离和细胞壁重塑形成较大气体空间的组织;甘蔗根的相关气腔主要见于皮层。 [23, 24] |
| 内皮层 | Endodermis | 位于根皮层内缘、包围中柱的一层组织,具有影响物质径向进入中柱的屏障特征。 [23, 26] |
| 水势 | Water potential | 以参考状态为基准描述水自由能状态的量,通常用压力单位表示;水在可通行路径上总体趋向较低水势。 [26] |
| 木质化 | Lignification | 木质素在细胞壁中形成和沉积的过程,具有组织位置与发育阶段差异。 [27, 28] |
| 组织化学染色 | Histochemical staining | 利用组织内的化学反应或相互作用显示特定成分及其分布的方法。 [28] |
| 气孔导度 | Stomatal conductance | 描述气体经气孔扩散通道传输能力的功能量;植物气体交换中须说明是对水汽还是二氧化碳定义。 [31, 32] |
| 内在水分利用效率 | Intrinsic water-use efficiency | 常用净光合速率 A 除以水蒸气气孔导度 gₛ 表示;应同时报告两个分量及测量条件,不能当作全季产量与耗水量的比值。 [35] |
| 吐水器 | Hydathode | 与植物维管系统相联系、使液态水排到叶表或叶缘的结构;本章讨论甘蔗叶尖具有水孔和疏松组织的吐水器。 [33] |
| 维管束鞘细胞 | bundle sheath cell | 围绕叶片维管束的细胞;在甘蔗典型 C4 主通路中承担四碳酸脱羧释放 CO₂ 及 Rubisco 再固定的重要环节。不是叶片包裹茎部的叶鞘。 [18, 42] |
| 光呼吸 | photorespiration | 由 Rubisco 加氧反应引发的代谢回收过程,涉及碳和能量代价;C4 碳浓缩显著压低它,但不能写成完全不存在。它与一般细胞呼吸不是同一概念。 [42] |
| 糖储量与碳通量 | sugar pool and carbon flux | 储量指某一时刻、明确区室内有多少糖;通量指单位时间通过某环节的碳量。浓度还要结合该区室质量或体积才能估计储量,不能单凭浓度变化反推全部通量。 [37, 39] |
| 再动员 | remobilization | 已有储藏物质被重新利用并供给当前需求的过程;种茎糖支持芽和新梢建立是本章实例。它不意味着原有储量全部转入新梢,仍需考虑呼吸等去向。 [39] |
| 独脚金内酯 | strigolactones (SLs) | 参与分枝、分蘖及环境响应的植物信号分子类别。甘蔗 ScD27.2 研究提供相关功能证据,但具体作用依遗传背景和条件而定,不能把某一激素等同于通用增产开关。 [40] |
| 开花诱导 | floral induction | 植株接受促使生殖转变的内外信号的过程。实验中须说明材料及处理制度;接受诱导处理本身不等于已经抽穗。 [43, 13] |
| 茎尖生殖转变 | floral transition of the shoot apical meristem | 茎尖由营养生长状态转向生殖发育的变化;本稿以组织学确认的状态与叶片表达信号分别记录。 [43] |
| 小花开放 | anthesis | 花器官进入开放并发挥生殖功能的阶段;应与花序从叶鞘中伸出的抽穗分别记录,不用二者互相替代。 [13] |
| 花粉生活力(花粉活力) | pollen viability | 花粉保持存活及潜在生理功能的能力。研究数值取决于染色、培养等检测方法,须注明方法;染色阳性不直接等于完成受精。 [44] |
| 宿根作期 | ratoon crop cycle | 利用前次采收后保留蔗兜再生而形成的一轮作物周期。第一宿根、第二宿根等属于作期编号,不等同于每条根的生理年龄。 [14, 7] |
| 根系周转 | root turnover | 一定时间内根的形成与死亡、更替过程。净根量增减不足以单独表示全部新生与死亡,解释时须明确观察方法、空间范围和时间间隔。 [14] |
参考文献与核读范围
- Royal Botanic Gardens, Kew; Plants of the World Online. Saccharum officinarum L.. 动态名录;访问于2026-10-21.接受种名用于分类定位,不能据此确定未鉴定照片或商业杂交品种的身份。
- A. L. Healey; O. Garsmeur; J. T. Lovell; et al.. The complex polyploid genome architecture of sugarcane. 2024-03-27 online; 2024-04-25 issue. DOI: 10.1038/s41586-024-07231-4.引用范围:论文首页(含原始摘要及开篇说明)。R570 是单一品种,其复杂多倍体背景不能推导出所有甘蔗共同的染色体数,也不能独立证明完整的分类与驯化年代。
- Hardev S. Sandhu; M. P. Singh; R. A. Gilbert; D. C. Odero. Sugarcane Botany: A Brief View. Original 1993-08; revised 2016-02; reviewed 2019-07 (PDF front-page footnote).采用基础器官描述;佛罗里达的用水示例、历史管理建议及韧皮部运输方向的概括,不能直接推广为全球通则。
- Tamil Nadu Agricultural University (institutional page; named author not shown). Expert System for Sugarcane: Botany and Climate. unknown.采用经交叉印证的基础器官描述,不采用过时的分类统计、统一气候数值及有争议的根原基位置表述。“永久根”描述已建立根系的作用,不表示单条根永久存活。
- International Union for the Protection of New Varieties of Plants (UPOV). Sugarcane: Guidelines for the Conduct of Tests for Distinctness, Uniformity and Stability, TG/186/1. 2005-04-06.引用的是 2005 年版形态性状测试指南,不表示它是 2026 年最新版本。原图的阅读与引用不构成自由转载许可。
- Terry Bull. The Sugarcane Plant. 2000.采用基础器官与发育说明,不把其中旧统计、旧品种建议及温度或日历安排作为当前全球通用标准。
- Liping Zhao; Kun Yang; Peifang Zhao; Wei Qin; Yong Zhao; Jianrong Zhu; Fenggang Zan; Jun Zhao; Xin Lu; Caiwen Wu; David M. Burner; Xuekuan Chen; Jiayong Liu. Sugarcane root distribution and growth as affected by genotype and crop cycle. 2020, April–June issue. DOI: 10.1590/1678-4499.20190407.研究涉及避雨设施下的四个基因型和两个试验区组,成像深度为 1.08 米。所报告的宿根根系分布比例只适用于该试验材料和观测范围,不等同最大扎根深度或所有产区的共同分布。
- Augusto Yukitaka Pessinatti Ohashi; Regina Célia de Matos Pires; Rafael Vasconcelos Ribeiro; André Luiz Barros de Oliveira Silva. Root growth and distribution in sugarcane cultivars fertigated by a subsurface drip system. 2015, April–June issue. DOI: 10.1590/1678-4499.0295.引用范围:原始摘要。研究的观测土层深度为 0.8 米,地下滴灌条件下的根系时间变化和有效深度不能推广到全部品种与田间条件。
- Germano Siqueira; Adriane M. F. Milagres; Walter Carvalho; Gerald Koch; André Ferraz. Topochemical distribution of lignin and hydroxycinnamic acids in sugar-cane cell walls and its correlation with the enzymatic hydrolysis of polysaccharides. 2011-03-16. DOI: 10.1186/1754-6834-4-7.显微组织与化学组分结果对应所取样的组织,不能据此规定所有品种和株龄共同的维管束数量、茎外层厚度或木质素比例。
- Karin Ruth Jacobsen; D. G. Fisher; A. Maretzki; P. H. Moore. Developmental Changes in the Anatomy of the Sugarcane Stem in Relation to Phloem Unloading and Sucrose Storage. 1992-02. DOI: 10.1111/j.1438-8677.1992.tb00269.x.引用范围:原始摘要。作者关于蔗糖卸载的路径解释不能作为全部基因型和发育阶段唯一适用的运输机制。
- J. Mabry McCray; Ronald W. Rice; Ike V. Ezenwa. Sugarcane Leaf Tissue Sample Preparation for Diagnostic Analysis. Original 2005-10; revised 2021-09 (PDF footnote).该诊断取样方法服务于佛罗里达的具体检测体系,不能直接作为所有甘蔗实验室的统一方案。
- Haifeng Yan; Huiwen Zhou; Hanmin Luo; Yegeng Fan; Zhongfeng Zhou; Rongfa Chen; Ting Luo; Xujuan Li; Xinlong Liu; Yangrui Li; Lihang Qiu; Jianming Wu. Characterization of full-length transcriptome in Saccharum officinarum and molecular insights into tiller development. 2021-05-22. DOI: 10.1186/s12870-021-02989-5.研究为单一品种的温室盆栽试验,基因表达关联和候选基因不等于已验证的田间因果干预。论文对 GT42 的物种称呼不能用于认定所有现代品种均为纯种 S. officinarum。
- Office of the Gene Technology Regulator, Australian Government. The Biology of Saccharum spp. (Sugarcane), Version 3. 2011-05.引用范围:形态、繁殖结构及 fuzz/种子相关章节。这是政府机构汇编的生物学资料,其中区域性开花和根深数据不构成新的通用测量值或管理处方。
- B. Ball-Coelho; E. V. S. B. Sampaio; H. Tiessen; J. W. B. Stewart. Root dynamics in plant and ratoon crops of sugar cane. 1992-05. DOI: 10.1007/BF00010975.引用范围:原始摘要。作期、焚烧与水分条件相互交织,不能据此确定普遍的根死亡比例或保证宿根一定优于新植。
- Carlos A. Diniz; Vilma M. Ferreira; Clíssia B. da Silva; Geraldo V. S. Barbosa; João C. de Araújo Neto; João M. dos Santos. Production and performance of sugarcane seeds (caryopses) from different hybridizations involving RB92579. 2018. DOI: 10.1590/0001-3765201820170271.结果对应 RB92579 与六个受试亲本的杂交组合,不能用来排列所有品种的优劣或规定统一种子萌发率。
- Anna L. Hale; Paul M. White; Charles L. Webber III; James R. Todd (USDA-ARS). Effect of growing media and fertilization on sugarcane flowering under artificial photoperiod. 2017-08-03. DOI: 10.1371/journal.pone.0181639.研究在路易斯安那设施内采用单一品种盆栽,多个养分因素同时变化,且未测定已经启动而尚未抽出的花序。结果不能直接转换为商业蔗田的施肥建议。
- M. D. Hatch; C. R. Slack. Photosynthesis by sugar-cane leaves. A new carboxylation reaction and the pathway of sugar formation. 1966-10. DOI: 10.1042/bj1010103.引用范围:原始摘要。1966 年的摘要支持早期碳同化途径发现,不能单独证明现代 C4 酶区室化的全部细节,也不提供通用效率或增产比例。
- Xiuting Hua; Huihong Shi; Gui Zhuang; et al.. Regulatory network of the late-recruited primary decarboxylase C4NADP-ME in sugarcane. 2024-09-14 online; 2024-12 issue. DOI: 10.1093/plphys/kiae455. 作者机构原文摘要引用范围:作者机构刊载的原始摘要。酶学试验材料为割手密(S. spontaneum),不能视为所有商业杂交品种的田间验证。
- Kerry B. Walsh; Russell C. Sky; Sharon M. Brown. The anatomy of the pathway of sucrose unloading within the sugarcane stalk. 2005-04-26. DOI: 10.1071/FP04102.引用范围:原始摘要。后韧皮部运输及随后质外体步骤仍须保留作者的可能性解释,维管束分布数值也不能推广到全部基因型。
- Donna Glassop; Ute Roessner; Antony Bacic; Graham D. Bonnett. Changes in the Sugarcane Metabolome with Stem Development. Are They Related to Sucrose Accumulation?. 2007-04-01. DOI: 10.1093/pcp/pcm027.引用范围:原始摘要。单一品种的代谢物相关性不等于因果关系,不能据此规定统一的糖分梯度或成熟阈值。
- Hardev S. Sandhu; Robert A. Gilbert; James M. Shine Jr.; Ronald W. Rice; D. C. Odero, UF/IFAS. Maturity Curves and Harvest Schedule Recommendations for CP Sugarcane Varieties. Online revision date not established; based on experiments 1998/1999–2001/2002 and journal report Gilbert et al. 2004.研究对应南佛罗里达有机土壤、指定 CP 品种及历史试验,收获日历和旧品种建议不能直接移用于其他地区或当前全球生产。
- CSIRO. Sugarcane research for a profitable industry. 页面未明确标注发布日期.采用叶片同化、茎储糖及研究方向的基础说明,不据此判断当前产业规模或测序进展。
- D. C. C. Leite; A. Grandis; E. Q. P. Tavares; A. R. Piovezani; S. Pattathil; U. Avci; A. Rossini; A. Cambler; A. P. De Souza; M. G. Hahn; M. S. Buckeridge. Cell wall changes during the formation of aerenchyma in sugarcane roots. 2017-11-10 (issue date). DOI: 10.1093/aob/mcx050.引用范围:原始摘要和完整图注。组织变化对应受试根段,不能推导统一气腔比例或距离;关于力学与气体通透作用的结论仍包含作者的机制解释。
- Eveline Queiroz de Pinho Tavares; Marina Camara Mattos Martins; Adriana Grandis; Grayce H. Romim; Amanda Rusiska Piovezani; Jonas Weissmann Gaiarsa; Marcos Silveira Buckeridge. Newly identified miRNAs may contribute to aerenchyma formation in sugarcane roots. 2020-03-26. DOI: 10.1002/pld3.204.研究采用四月龄 SP80-3280 和三个混合生物学重复。靶基因预测及表达关联不能直接证明通气组织形成的因果机制或田间耐涝性。
- Barry S. Glaz; Dolen R. Morris; Samira Daroub. Sugarcane photosynthesis, transpiration, and stomatal conductance due to flood and water table. 2004-09-01. DOI: 10.2135/cropsci2004.1633.引用范围:原作者机构提供的技术摘要。结果对应两个基因型、特定土壤及带排水过程的短期周期性淹水,不能代表持续长期积水或统一地下水位方案,且未直接测量根水力导度。
- OpenStax, Rice University. Biology 2e, 30.3 Roots; 30.5 Transport of Water and Solutes in Plants. Online chapters; revision date not stated on inspected pages.作为一般植物水分运输与根结构背景,不是甘蔗特定组织尺寸、屏障化学、水通道调控、水力参数或耐涝能力的直接试验证据。
- Yanagui K; Camargo ELO; Abreu LGF; Nagamatsu ST; Fiamenghi MB; Silva NV; Carazzolle MF; Nascimento LC; Franco SF; Bressiani JA; Mieczkowski PA; Grassi MCB; Pereira GAG. Internode elongation in energy cane shows remarkable clues on lignocellulosic biomass biosynthesis in Saccharum hybrids. 2022-04-09 (first publication); Gene 828, June 2022. DOI: 10.1016/j.gene.2022.146476.引用范围:原始摘要。研究对象为能源甘蔗的特定伸长节间,仅支持定性的发育梯度说明,不能据此给出未经核实的基因效应或空间分界数值。
- Viviane Guzzo de Carli Poelking; Andrea Giordano; Maria Esther Ricci-Silva; Thomas Christopher Rhys Williams; Diego Alves Peçanha; Marília Contin Ventrella; Jorge Rencoret; John Ralph; Márcio Henrique Pereira Barbosa; Marcelo Loureiro. Analysis of a Modern Hybrid and an Ancient Sugarcane Implicates a Complex Interplay of Factors in Affecting Recalcitrance to Cellulosic Ethanol Production. 2015-08-07. DOI: 10.1371/journal.pone.0134964.研究比较一年生盆栽 RB867515 与一份割手密材料的取样节间,不能概括为从古老到现代甘蔗的统一演化规律。试验未直接测量切割力或倒伏表现。
- Ahmed Abdelhady; Mohamed Ibrahim; Hani Mansour; Ahmed El-Shafie; Eid Abd El Rahman. Physico-Mechanical Properties of Sugarcane Stalks. 2023-08-18. DOI: 10.2478/ata-2023-0019.研究涉及埃及三个品种及采后含水状态,加载速度、截面积假设和夹具均影响结果。原文部分应力单位标注存在不一致,因此这里只引用明确归属于作者的定性比较,不采用其强度数值作为通用切割参数。
- Lucia Mattiello; Diego Mauricio Riaño-Pachón; Marina Camara Mattos Martins; Larissa Prado da Cruz; Denis Bassi; Paulo Eduardo Ribeiro Marchiori; Rafael Vasconcelos Ribeiro; Mônica T. Veneziano Labate; Carlos Alberto Labate; Marcelo Menossi. Physiological and transcriptional analyses of developmental stages along sugarcane leaf. 2015-12-29. DOI: 10.1186/s12870-015-0694-z.研究针对规定生长条件下 SP80-3280 的第一片叶枕露出叶,沿同一叶片的差异不能等同不同叶龄或整个冠层的差异。气孔计数结论引用自主文讨论,未以补充材料进行独立复核。
- Hiroo Takaragawa; Masataka Wakayama. Responses of leaf gas exchange and metabolites to drought stress in different organs of sugarcane and its closely related species Erianthus arundinaceus. 2024-09-10; correction 2024-09-27; article change history also records ESM-citation restoration on 2024-11-21. DOI: 10.1007/s00425-024-04508-w.甘蔗与斑茅的比较来自指定材料的受控盆栽试验,跨物种推广须受材料与环境条件限制。瞬时内在水分利用效率不能替代整个生长季的水分生产率。
- F. C. Meinzer; D. A. Grantz. Stomatal control of transpiration from a developing sugarcane canopy. 1989-08. DOI: 10.1111/j.1365-3040.1989.tb01232.x.引用范围:原始摘要。叶片与冠层蒸腾关系对应特定冠层发育和大气条件,不能据此给出统一的耦合系数或最优叶面积指数。
- Alain Jauneau; Aude Cerutti; Marie-Christine Auriac; Laurent D. Noël. Anatomy of leaf apical hydathodes in four monocotyledon plants of economic and academic relevance. 2020-09-17. DOI: 10.1371/journal.pone.0232566.甘蔗样本涉及 HOCP04838、Q155 或 CAS2,但其叶位无法确定。原文部分距离表述存在歧义,因此不据此提出统一水孔间距。
- Pooja Negi; Manish Pandey; Radha K. Paladi; Arnab Majumdar; Shailaja P. Pandey; Vitthal T. Barvkar; Rachayya Devarumath; Ashish K. Srivastava. Stomata-Photosynthesis Synergy Mediates Combined Heat and Salt Stress Tolerance in Sugarcane Mutant M4209. 2025-03-07 (online); 2025-06 (48:4668–4684). DOI: 10.1111/pce.15424.结果来自 Co 86032 与辐射突变体 M4209 的受控盆栽试验:供水充足,热处理为昼 42℃/夜 30℃,盐处理逐步达到 200 mM NaCl,处理持续 15 天;单独热处理的结果不能概括为高温必然抑制生长。表皮印迹与气孔数据不直接衡量整个生长季的田间用水,CO₂ 导度也不能直接替代水蒸气气孔导度。
- Patrick Z. Ellsworth; Paul M. White Jr.. Carbon Isotopic Composition Reflects Intrinsic Water Use Efficiency But Not its Component Traits in Sugarcane. 2024-09-25. DOI: 10.1007/s12042-024-09367-z.研究来自路易斯安那一处雨养新植蔗试验,气体交换测量使用切下后插水维持的蔗茎。碳同位素与内在水分利用效率的关联不足以精细排列材料或分别反推同化速率和气孔导度,也不能替代作物尺度的水分生产率。
- Alistair J. McCormick; Michael D. Cramer; Derek A. Watt. Changes in Photosynthetic Rates and Gene Expression of Leaves during a Source–Sink Perturbation in Sugarcane. 2007-10-17 (online); 2008-01 (101:89–102). DOI: 10.1093/aob/mcm258.研究对十二月龄 N19 进行 14 天源库扰动,仅保留一片成熟叶受光;该叶响应不等于整株产量变化。转录相关性和讨论模型不能直接证明因果定位,引用的玉米背景也不属于新增甘蔗观测。
- Frederik C. Botha; Annelie Marquardt. Metabolic Control of Sugarcane Internode Elongation and Sucrose Accumulation. 2024-07-09. DOI: 10.3390/agronomy14071487.结果对应 KQ228、特定季节阶段及生长调节剂试验,蛋白丰度或未检出结果不代表普遍存在的代谢开关或零酶活性。原文重复数表述不一致,因此不在此确定精确重复数,也不由研究结果给出药剂施用建议。
- Donna Glassop; Jiri Stiller; Graham D. Bonnett; Christopher P. L. Grof; Anne L. Rae. An analysis of the role of the ShSUT1 sucrose transporter in sugarcane using RNAi suppression. 2017-06-01 (online); 44(8):795–808. DOI: 10.1071/FP17073.引用范围:原始摘要。五个 RNAi 株系没有共同的一致表型,结果更支持蔗糖回收作用的解释,不能据此确定全部转运蛋白功能、卸载路径或普遍农艺收益。
- Ashok K. Verma; Arun K. Agarwal; R. S. Dubey; S. Solomon; S. B. Singh. Sugar partitioning in sprouting lateral bud and shoot development of sugarcane. 2012-11-11 (online); 2013-01 (Plant Physiology and Biochemistry 62). DOI: 10.1016/j.plaphy.2012.10.021.引用范围:原始摘要。CoS 97264 在黑暗与明暗处理下的 0—21 天观测支持糖库动员,但糖含量和酶活性变化不等同完整的同位素碳收支,也不能给出统一出苗日历或酶反应通量。
- Zhuandi Wu; Xin Hu; Wenzhi Wang; Zhengying Luo; Naveed ur Rehman; Peifang Zhao; Jiayong Liu; Shuzhen Zhang; Fenggang Zan; Xinlong Liu; Jiawen Guo. ScD27.2 gene regulation mechanism during sugarcane tillering and growth. 2025-04-18 (online); 2026 (25(2):694–708). DOI: 10.1016/j.jia.2025.04.017.研究涉及特定 XTT22 转基因株系和试验条件,盆栽或桶栽产量性状不能证明多地点田间收益。中英摘要对 OE9 侧芽萌动的描述存在不一致,该细节未被用于本篇结论。
- Yanye Li; Ting Yang; Zongtao Yang; Xujuan Li; Xin Lu; Jianming Wu; Jiayong Liu; Fenggang Zan; Yong Zhao; Jun Deng; Xinlong Liu. Analysis of Axillary Bud Germination Regulatory Network in Sugarcane Based on Transcriptome and Weighted Gene Co-Expression Network Analysis. 2026-04-14. DOI: 10.3390/plants15081200.阶段性表达关联和 RT-qPCR 验证不等于基因功能因果试验,形态上界定的静止阶段也不能单独证明内源休眠。材料在黑暗中培养,光合作用相关转录增强或叶片出现不能证明实际自养碳固定。
- Ryuzi Kanai; Gerald E. Edwards. The Biochemistry of C4 Photosynthesis. 1999.作为 C4 生物化学机制的专家综述使用,不是新的甘蔗试验。共同途径逻辑可作背景,但不能把玉米的特定数值直接移用于甘蔗。
- João Ricardo Vieira Manechini; Paulo Henrique da Silva Santos; Elisson Romanel; Michael dos Santos Brito; Maximiliano Salles Scarpari; Stephen Jackson; Luciana Rossini Pinto; Renato Vicentini. Transcriptomic Analysis of Changes in Gene Expression During Flowering Induction in Sugarcane Under Controlled Photoperiodic Conditions. 2021-06-15. DOI: 10.3389/fpls.2021.635784.研究对象为设施光周期条件下 3.8 升盆栽的单一品种 IACSP96-7569;第七周为 45 天,第十三周的具体日数在原文与补图中不一致。RNA 表达关联不等于功能因果,引用既有研究的补图也不是第二项独立试验。
- Sandy J. Snyman; Dennis M. Komape; Hlobisile Khanyi; Johnnie van den Berg; Dirk Cilliers; Dyfed Lloyd Evans; Sandra Barnard; Stefan J. Siebert. Assessing the Likelihood of Gene Flow From Sugarcane (Saccharum Hybrids) to Wild Relatives in South Africa. 2018-06-07. DOI: 10.3389/fbioe.2018.00072.结果来自南非两年的多点观察,部分地点与品种安排相关,不能将全部差异独立归因于纬度。花粉染色不直接测量受精率、后代存活或成功基因流。
- J. S. Pierre; A. L. Rae; G. D. Bonnett. Abiotic Limits for Germination of Sugarcane Seed in Relation to Environmental Spread. 2014-09-18. DOI: 10.1007/s12042-014-9141-9.试验使用经历低温保存的杂交 fuzz 材料,未分离逐粒颖果;八组合用于温度与光暗试验,其中四组合用于水势试验,温度结果按 30℃ 对照归一化,水势结果按 0 MPa 对照归一化,均不是逐粒计数的绝对萌发率。实测温度为 18—42℃,较低基温为模型估计,实验室与 PEG 水势结果不能直接作为田间阈值。
- Sisi Zhang; Feiyan Zhao; Zongtao Yang; Ting Yang; Yanye Li; Zhongfu Zhang; Jianming Wu; Jiayong Liu; Jun Deng; Yong Zhao; Yuebing Zhang. Transcriptome time-course analysis unravels the regulatory networks governing ratooning decline in sugarcane. 2026-01-12. DOI: 10.3389/fpls.2025.1739058.研究为云南开远单地点三个品种连续五年的新植至第四宿根试验,每年九月采集 0—20 厘米土层细吸收根,不能代表所有根类与根龄。作期与年份同步,表达网络尚无直接遗传功能验证,因此不能排除环境影响或确定普遍的宿根淘汰作期。
- Adriana Cheavegatti-Gianotto et al.. Sugarcane (Saccharum X officinarum): A Reference Study for the Regulation of Genetically Modified Cultivars in Brazil. 2011-02-22. DOI: 10.1007/s12042-011-9068-3.引用范围:植物学描述中的颖果性质及相关图注,用作术语背景。这是参考综述,较早的分类和形态概括、花粉形状与活力关系不构成新的试验证据。
- Yinjuan Shen; Muhammad Adnan; Fumin Ma; Liyuan Kong; Maoyao Wang; Fuhong Jiang; Qian Hu; Wei Yao; Yongfang Zhou; Muqing Zhang; Jiangfeng Huang. A high-throughput phenotyping method for sugarcane rind penetrometer resistance and breaking force characterization by near-infrared spectroscopy. 2023-09-28. DOI: 10.1186/s13007-023-01076-0.茎外层穿刺阻力与折断力是不同响应。近红外模型须按标定材料、样本处理和仪器条件使用,不能直接替代田间倒伏判定。
- Javad Taghinezhad; Reza Alimardani; Ali Jafary. Models of mechanical cutting parameters in terms of moisture content and cross section area of sugarcane stalks. 2014-03-28.引用范围:原始摘要。只采用试验变量和测量指标,不把摘要中的最优系数直接作为割台设计参数。
- Zhenhui Zheng; Qingyu Guo; Yingcong Chen; Dongjie Du; Shuo Wang; Weihua Huang; Lijiao Wei; Ming Li. Mechanical characterization and transversely isotropic finite element modelling of sugarcane stalk. 2026-09-16. DOI: 10.3389/fpls.2026.1938979.研究采用单一成熟品种桂糖 21,未直接定量含水率及解剖特征。宏观准静态破坏前响应不能作为动态切割或组织破裂的验证。
- Tao Liu; Qingqing Wang; Jiaxun He; Dongbo Xie; Zhipeng Liu; Lichao Liu; Liqing Chen. Analysis of the mechanical transfer characterization between lodged sugarcane and the cutter by simulation modeling with UMAT subroutine. 2024-06. DOI: 10.25165/j.ijabe.20241703.8880.引用范围:原始摘要。仅据此说明各向异性切割模型与试验比较的研究方法,不能把仿真中的最优角度或转速直接移用于其他收割机。
资料核对:2026年10月21日。引用原始摘要处已标明;研究结果仅适用于相应材料和试验条件。OGTR为2011年5月第3版,网址目录中的2021不是出版年。
图像署名与许可
BOT-P01 植物园中的栽培甘蔗 · Forest & Kim Starr · CC BY 3.0 · 原始图片页

BOT-P02 栽培甘蔗的花序 · Forest & Kim Starr · CC BY 3.0 · 原始图片页

BOT-P05 蔗芽与茎节 · Zenyrgarden · CC BY-SA 4.0 · 原始图片页

BOT-P06 带芽种茎 · Zenyrgarden · CC BY-SA 4.0 · 原始图片页

BOT-P10 从单茎观察到田间群体 · Anna Frodesiak · CC0 · 原始图片页

BOT-P11 种茎节部萌发的根 · Zenyrgarden · CC BY-SA 4.0 · 原始图片页
BOT-P12 甘蔗基部的根与芽 · Thamizhpparithi Maari · CC BY-SA 4.0 · 原始图片页
BOT-P13 甘蔗节间外侧区域的显微结构 · Germano Siqueira; Adriane M. F. Milagres; Walter Carvalho; Gerald Koch; André Ferraz · CC BY 2.0 · 原始图片页
BOT-P14 甘蔗叶片的中脉与纵向叶脉 · Deishini Mariam · CC BY-SA 4.0 · 原始图片页

BOT-P15 甘蔗表皮印迹中的气孔及对应统计:Negi 等 2025 原图 3 · Pooja Negi and coauthors, 2025 · CC BY 4.0 · 原始图片页
BOT-P16 力学研究中的甘蔗茎段试样 · Zhenhui Zheng; Qingyu Guo; Yingcong Chen; Dongjie Du; Shuo Wang; Weihua Huang; Lijiao Wei; Ming Li · CC BY 4.0 · 原始图片页
BOT-P17 甘蔗茎段三点弯曲试验 · Zhenhui Zheng; Qingyu Guo; Yingcong Chen; Dongjie Du; Shuo Wang; Weihua Huang; Lijiao Wei; Ming Li · CC BY 4.0 · 原始图片页
来源图版含10张实物或试验照片、1张组织显微图、1张显微图与统计图组成的完整研究复合图。图像保留原有内容、标尺和标签。CC BY-SA图像的改编须遵守其许可。BOT-D01—D05是GAKI原创解释性示意。
版本与阅读说明
保留R2的12个基础单元,新增长篇进阶单元13—22,文献去重并延续编号。中文完整正文;英文标题、单元摘要、图注及术语。不是逐段英文全译。
归属:世界甘蔗百科 → 植物学(SUG-BOTANY)。扩充图文稿 R3,编写日期:2026-10-21。
观察表与方法图是原创研究框架,不代表GAKI已开展相关田间或整机试验。